Oiseaux du monde Statut UICNNT · Quasi menacéeUICN mondiale. BirdLife v10 (2025) ; correspondance taxonomique AviList 2026 / IOC 15.2 ; contrôle : 29.10.2026. L’année de la liste n’est pas la date d’évaluation de l’espèce. Source et méthode · BirdLife OrdreCharadriiformesCharadriiformes FamilleLaridaeLaridae
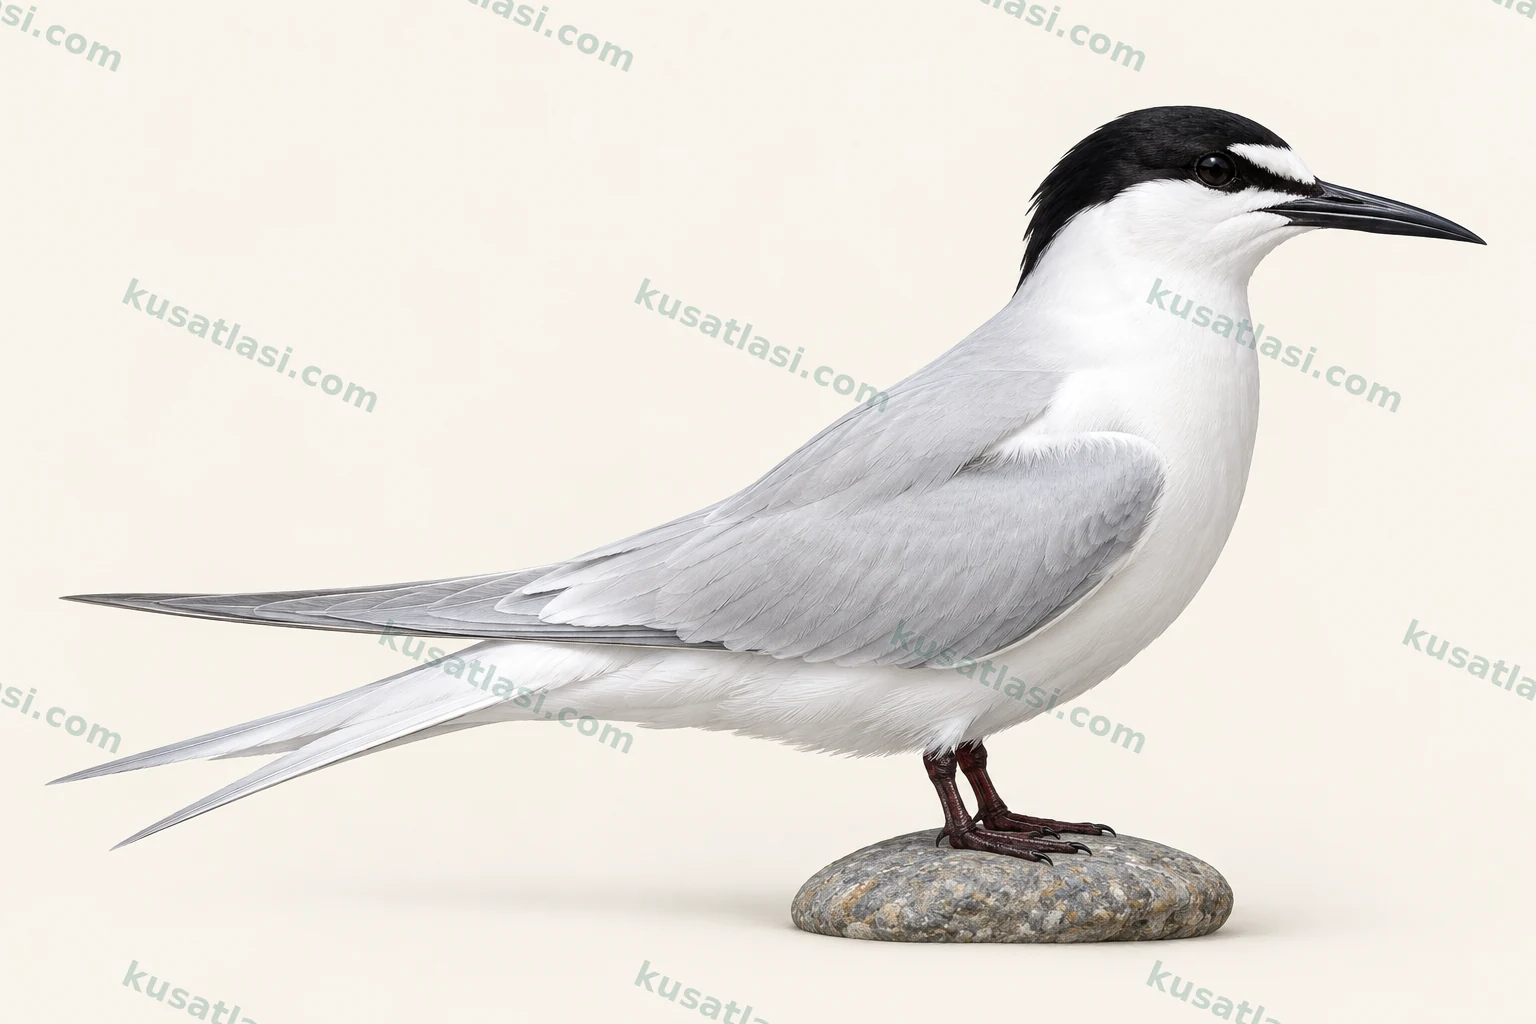
Sterne tara
Sterna striata
Sterne marine claire de Nouvelle-Zélande et des îles voisines ; en plumage nuptial, une fine bande frontale blanche reste entre bec noir et calotte noire.
Biométrie
Longueur
Mâle39–42 cm
Femelle39–42 cm
Valeur commune à l’espèce
Envergure
Mâle79–82 cm
Femelle79–82 cm
Valeur commune à l’espèce
Poids
Mâle103–160 g
Femelle103–160 g
Valeur commune à l’espèce
Sterne tara
Nouvelle-Zélande, îles voisines et côtes du sud-est australienGuide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreFine bande blanche en plumage nuptial, blanc plus étendu hors reproduction.
Dessus gris très pâle et dessous blanc ; parfois une teinte rose temporaire.
Longue et profondément fourchue ; plumes externes plus courtes chez les jeunes.
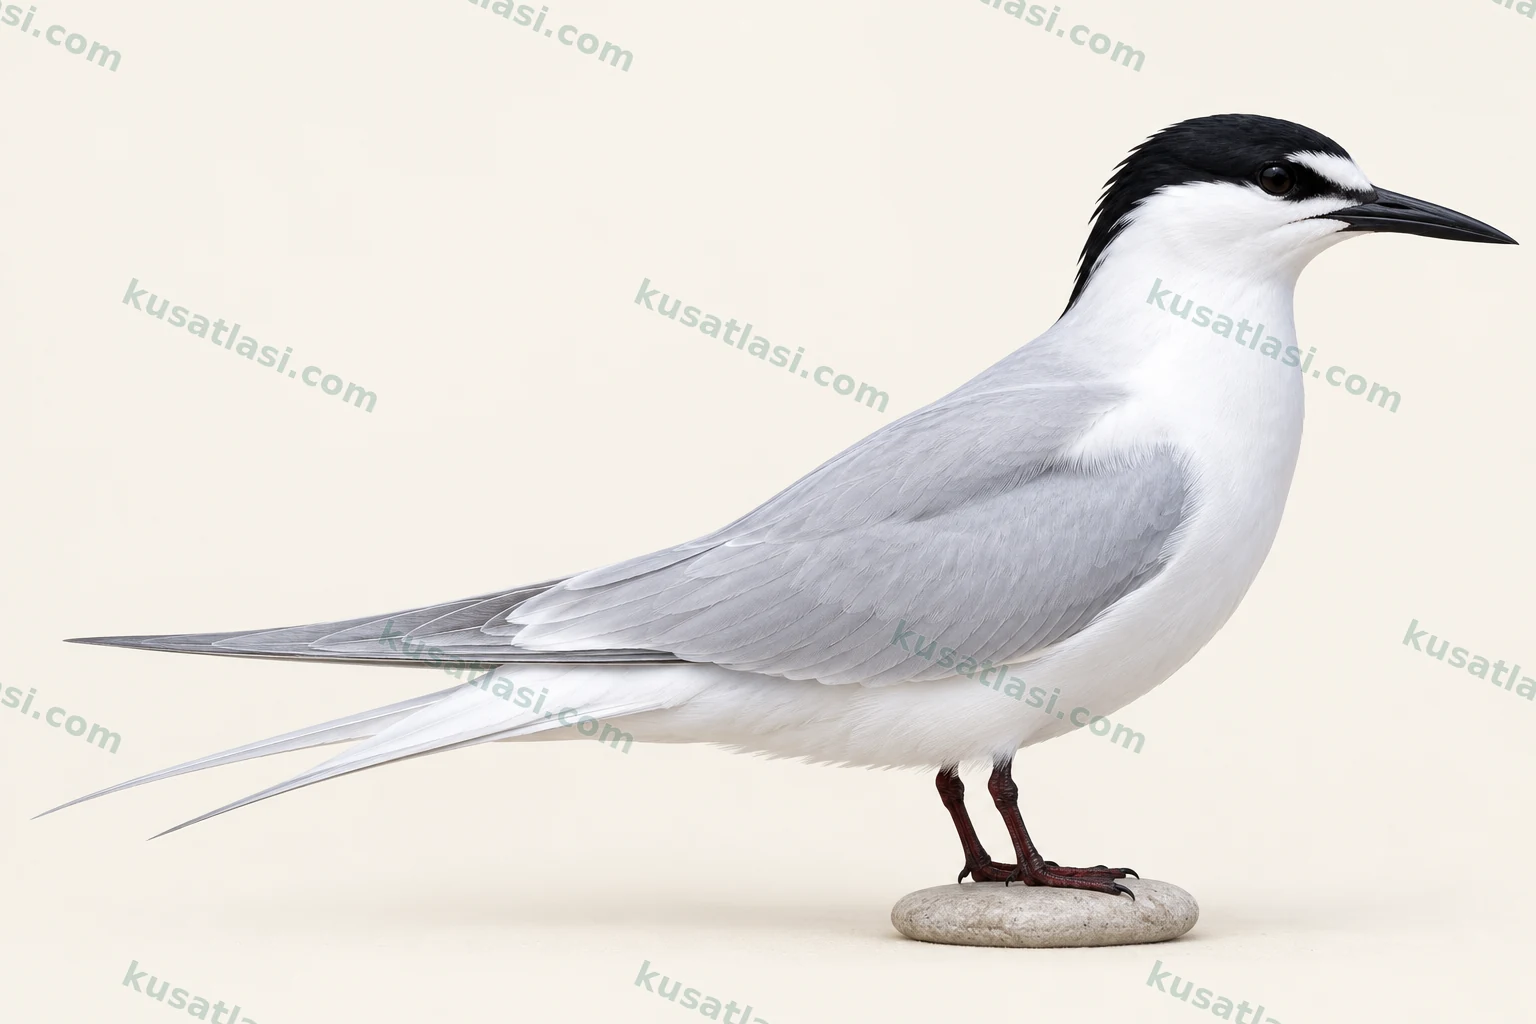
Comparer mâle et femelle
 FemelleMâle
Les adultes des deux sexes sont semblables ; un dessous rose peut apparaître chez les deux. Les jeunes ont des stries sombres sur le dessus et une queue plus courte.
Où le chercher dans son aire naturelle ?
Mer côtière, bancs de poissons, lagunes et rivages de gravier ; observer sans approcher la colonie.
Les sources d’Australasie donnent octobre–février comme large période de reproduction ; certaines études néo-zélandaises soulignent octobre–janvier.
Janvier
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Nouvelle-Zélande et environs de la Tasmanie — description spécialisée du musée : large période de reproduction, avec début et fin variables localement.
Février
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Nouvelle-Zélande et environs de la Tasmanie — description spécialisée du musée : large période de reproduction, avec début et fin variables localement.
Mars
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Avril
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Mai
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Juin
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Juillet
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Août
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Septembre
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Octobre
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Nouvelle-Zélande et environs de la Tasmanie — description spécialisée du musée : large période de reproduction, avec début et fin variables localement.
Novembre
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Nouvelle-Zélande et environs de la Tasmanie — description spécialisée du musée : large période de reproduction, avec début et fin variables localement.
Décembre
La plupart restent en Nouvelle-Zélande ; une partie, surtout les immatures, se disperse en automne vers l’Australie. Nouvelle-Zélande et environs de la Tasmanie — description spécialisée du musée : large période de reproduction, avec début et fin variables localement.
Nid, œuf et incubation
Le nid est une dépression peu profonde au sol, parfois avec cailloux, coquilles ou végétaux. La ponte compte 1–2 œufs, trois rarement ; l’incubation dure 24–27 jours et le premier vol survient à 29–35 jours. Les deux parents assurent les soins.
Il émet un cri de contact fin et aigu et des sons plus rudes, rappelant des raclements, pour défendre la colonie.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
La Sterne tara Sterna striata est un oiseau marin clair à longue queue fourchue de Nouvelle-Zélande et de ses environs. En plumage nuptial, une fine bande frontale blanche demeure entre la calotte noire et le bec noir. Dessus gris pâle, dessous blanc, bec mince sombre et longue queue soutiennent ensemble l’identification. Le front blanc seul ne suffit pas : d’autres sternes peuvent aussi avoir le devant de la tête clair hors reproduction.
Chez l’oiseau au repos sur la côte, les plumes externes de la queue peuvent dépasser la pointe de l’aile fermée. Les ailes fines et la queue fourchue ressortent davantage en vol. Sa large présence en Nouvelle-Zélande peut faciliter l’identification, sans supposer que toutes les sternes du même rivage lui appartiennent. Tête, bec, dessus et queue sont contrôlés sur le même individu.
Aspect général et posture
La tête est bien marquée par rapport au corps ; le bec est long, mince et généralement droit. Dos et dessus des ailes sont gris très pâle, le dessous blanc. Sous une lumière forte, le dessus peut sembler presque blanc. Un angle favorable révèle une fine ligne sombre au bord antérieur de la rémige externe. Ce détail ne signifie pas que l’aile entière porte une vaste surface noire.
Une faible teinte rose se développe parfois sur les parties inférieures en période nuptiale et peut se voir chez les deux sexes. Elle n’est pas attendue avec la même intensité chez tous les oiseaux ni attribuée uniquement à la femelle. L’usure des plumes sombres peut rendre les pointes alaires plus visibles. On distingue le vrai dessin de la plume de la transparence provoquée par le contre-jour.
Mâles, femelles et jeunes
Les adultes des deux sexes ont un plumage d’ensemble semblable. La description spécialisée dit les femelles légèrement plus petites, mais la taille apparente d’un oiseau lointain ne détermine pas sûrement son sexe. Ni couleur du bec ni bande frontale n’autorisent une attribution certaine. On peut voir un individu offrir de la nourriture pendant la parade ; la supposition fondée sur l’apparence est notée séparément du comportement observé.
En plumage nuptial, la calotte noire s’étend derrière la nuque, mais une mince zone blanche reste entre elle et la base du bec. Hors reproduction, le noir recule et laisse un front blanc plus large. Il s’agit d’un changement saisonnier adulte, pas automatiquement d’une femelle ou d’un jeune. Les pattes peuvent varier du noirâtre au brun rouge sombre.
Les jeunes venant de commencer à voler portent de fines stries sombres et des taches brun pâle sur le dos et les couvertures alaires. Leur queue n’a pas encore les longues plumes externes adultes et peut moins dépasser la pointe alaire fermée. En grandissant et en muant, ils prennent progressivement des aspects proches de l’adulte non nuptial. La longueur de queue ne donne pas, à elle seule, un âge exact en jours ou en mois.
Premier vol et première reproduction sont distincts. Un jeune peut encore recevoir de la nourriture des parents après avoir appris à voler. Voler seul ne signifie pas être un adulte pleinement indépendant et capable de se reproduire.
Aspect en vol
Les ailes longues et étroites s’associent à une queue profondément fourchue. Celle-ci peut être ouverte à des degrés variables dans les virages et les approches de petits poissons. Le dessus de l’aile est gris pâle, le dessous surtout blanc ; de fines marques sombres peuvent se trouver aux extrémités externes. L’usure peut légèrement renforcer le sombre. Une unique image ombragée ne suffit ni à définir une large pointe noire ni à déterminer sûrement le sexe.
En prospectant au-dessus de l’eau, l’oiseau peut rester brièvement sur place puis plonger vers la surface. Tourner en groupe au-dessus de la mer peut relever de l’alimentation, sans indiquer directement une route migratoire. Voler loin de la côte ne prouve pas non plus une reproduction en plein océan. Suivre le lieu de pose ou de prise de nourriture éclaire le contexte du vol.
Voix et comportement
Il émet un cri de contact fin et aigu et des sons plus rudes, rappelant un raclement, pour défendre le nid. Plusieurs oiseaux appelant ensemble dans une colonie peuvent produire un bruit marqué. Des attaques en piqué contre une personne ou un prédateur approchant peuvent indiquer que l’observateur est trop près des nids. On augmente la distance au lieu de provoquer de nouvelles défenses pour une photo.
Avant la ponte, on peut voir le nourrissage de parade où le mâle offre un petit poisson à la femelle. Le lien du couple peut persister d’une saison à l’autre, sans règle certaine de maintien de chaque couple inchangé toute la vie. Colonies reproductrices denses et troupes alimentaires en mer sont des communautés différentes. Des centaines d’oiseaux ensemble ne démontrent pas autant de nids au même point.
Espèces similaires
Sterna hirundo et Sterna paradisaea peuvent montrer un front clair similaire, surtout hors reproduction. La Sterne tara donne une impression plus grande et plus pâle ; bec, queue, dessin alaire et étendue du noir sur la tête s’examinent ensemble. Le front blanc seul n’est pas décisif à toutes les saisons.
Sterna dougallii peut aussi être très pâle et avoir une longue queue. La fine bande frontale blanche nuptiale doit être vue avec le bec et les bords des ailes. Un léger rose du dessous n’est pas le signe certain d’une seule espèce. La queue dépassante ne suffit pas sous un angle incomplet.
Chlidonias albostriatus de Nouvelle-Zélande semble plus petit et plus sombre. Hydroprogne caspia est beaucoup plus grand, avec un puissant bec rouge. Ces proportions et différences de bec sont utiles dans les groupes côtiers mixtes ; un unique point brillant lointain n’établit toutefois pas à coup sûr l’espèce.
Répartition mondiale
Le centre de reproduction est formé des côtes néo-zélandaises et des îles voisines, dont Stewart, Chatham et Auckland. L’espèce niche aussi sur Flinders et Cape Barren, dans le groupe Furneaux du détroit de Bass. Elle n’est donc pas décrite comme endémique uniquement de Nouvelle-Zélande. Les côtes du sud-est australien sont importantes, notamment après la reproduction.
Situation dans son aire naturelle
La catégorie mondiale est Quasi menacée. Le classement en déclin du système néo-zélandais de conservation constitue une évaluation distincte ; les deux systèmes ne sont pas fusionnés en une même étiquette. Malgré de grands rassemblements côtiers occasionnels, les populations nicheuses ont baissé dans certaines régions. D’anciennes estimations élevées non vérifiées ne servent pas de total actuel.
Les données australiennes vont du sud du Queensland aux côtes de Nouvelle-Galles du Sud et du Victoria, à la Tasmanie et à certaines côtes d’Australie-Méridionale. L’alimentation peut aussi s’observer sur de grands cours d’eau du Canterbury néo-zélandais, bien que l’espèce reste généralement près de la mer. Une donnée intérieure ne prouve pas qu’elle niche dans tout l’intérieur du pays.
Migration
La plupart des oiseaux néo-zélandais restent dans la région même en hiver. Une partie, surtout jeunes et immatures, se disperse en automne vers le sud-est australien. Il serait incomplet de tous les qualifier de migrateurs obligatoires ou de tous les dire immobiles. La description spécialisée du musée laisse incertains les mouvements des oiseaux nichant en Tasmanie. Aucun trajet mensuel exact n’est tracé sur une mer sans données.
Habitat de reproduction
Sables côtiers, îlots fluviaux de gravier, saillies rocheuses, petites îles et falaises côtières peuvent héberger des colonies. Les nids au sol nu de colonies serrées contiennent des œufs difficiles à remarquer. Octobre–février constitue la large période de reproduction ; certaines études néo-zélandaises soulignent octobre–janvier. Dates locales et stades reproducteurs ne sont pas appliqués comme si toutes les côtes commençaient le même jour.
Emplacement du nid
Le nid est généralement une dépression peu profonde dans le sable ou la terre, parfois avec petits cailloux, fragments de coquilles ou végétaux. Des structures végétales plus marquées ont aussi été notées en milieu rocheux. La ponte typique compte un œuf ou deux, rarement trois. Le manuel donne environ 24 ou 25–27 jours d’incubation selon des fondements différents ; la portée vérifiée de 24–27 jours est conservée ici. Le premier vol est signalé à 29–35 jours. On n’entre pas entre les nids et on ne gêne pas la protection parentale des œufs et poussins.
Utilisation quotidienne de l’espace
La mer côtière, les baies, lagunes et parfois les cours d’eau sont utilisés pour chercher des poissons. Même après une année de succès, une colonie peut changer de site l’année suivante. Crues et hautes eaux affectent les lieux de nidification éphémères. Cette variabilité empêche de déduire l’abandon d’une région entière d’un ancien site paraissant vide une année. Les chiens sont tenus à l’écart des nids et les passages naturels des oiseaux restent libres.
Que mange-t-il ?
Les petits poissons et leurs larves sont les aliments principaux. Il peut pêcher en mer, en lagune et sur les rivières. Des rassemblements au-dessus de concentrations de poissons en présence de kahawai, de goélands et de puffins ont été signalés en mer. Cette association ne signifie ni vol permanent de poissons aux autres oiseaux, ni dépendance annuelle à une seule espèce de poisson.
Comment chasse-t-il ?
Il prospecte au-dessus de l’eau, peut rester brièvement en vol stationnaire et prend les poissons en plongeant vers la surface ou en l’explorant. Les spécialistes décrivent des plongeons depuis environ 5–10 mètres, sans exiger cette hauteur pour chaque tentative. Eau agitée, rochers et abords des récifs peuvent être alimentaires. Voir la prise du poisson permet de distinguer tentative et capture réussie.
Offrir un poisson pendant la parade et en apporter aux poussins diffèrent de l’alimentation propre de l’adulte. Un retour vers la côte avec un poisson peut suggérer des soins aux petits, mais ne devient pas une donnée certaine de reproduction sans voir le destinataire. Le rôle de la queue fourchue dans les changements de direction montre aussi l’intérêt de la posture en vol pour l’identification.
Le nom scientifique vient des stries du jeune
Striata renvoie aux fines stries sombres du dessus des jeunes venant de commencer à voler. L’oiseau ayant servi à la description historique était jeune. Attendre les mêmes stries marquées sur le dos adulte uni gris pâle serait une erreur. Savoir quel âge est décrit par un nom aide à évaluer adultes et jeunes séparément.
La colonie peut ne pas revenir au même lieu chaque année
Les études néo-zélandaises montrent que l’emplacement des colonies peut beaucoup varier. Un autre site peut être choisi même après une reproduction réussie. Îles de gravier, estuaires et surfaces côtières changent avec l’eau : l’ancien nid n’est pas une adresse permanente. Suivre des oiseaux bagués offre davantage de recul qu’une seule année d’observation.
S’éloigner du nid n’est pas voler
Un petit poussin peut gagner un endroit proche plus sûr avant de pouvoir voler. Le manuel rapporte un poussin de deux jours réchauffé sous un rocher voisin. Ce mouvement n’est pas le jour du premier vol. La période d’alimentation parentale après le début du vol se distingue aussi de ce premier jour.
Une observation de prédation n’explique pas tout le déclin
Aux îles Noises, des poussins ont directement été vus pris par Circus approximans. Une publication de 2023 rapporte cette donnée et discute un effet possible sur le succès local, sans dire que ce seul facteur explique de façon démontrée tout le recul régional prolongé. Prédation observée, cause possible et tendance globale sont des informations différentes.
L’âge de reproduction n’est pas une valeur fixe unique
L’étude originale suivant des oiseaux bagués à Kaikoura a trouvé certains nicheurs à trois ans, beaucoup d’autres commençant plus tard. Cet échantillon régional ne signifie pas que tous commencent à un anniversaire précis. Les données d’oiseaux d’âge connu sont plus solides qu’une estimation fondée uniquement sur l’aspect adulte.