Aves del mundo Estado UICNLC · Preocupación menorCategoría global de la UICN. BirdLife v10 (2025); correspondencia taxonómica: AviList 2026 / IOC 15.2; comprobación: 29.10.2026. El año de la lista no es la fecha de evaluación de la especie. Fuente y método · BirdLife OrdenPasseriformesPaseriformes FamiliaCalyptomenidaeCalyptomenidae
Eurilaimo Africano
Smithornis capensis
Pequeña ave forestal de pico ancho y plano, cola corta y estrías pardas y blancas. Puede mostrar plumas dorsales blancas en exhibición y producir sonido mecánico por vibración de plumas alares.
Medidas
Longitud
Macho12–14 cm
Hembra12–14 cm
Valor común de la especie
Longitud del ala
Macho7,01 cm
Hembra7,01 cm
Valor común de la especie
Peso
Macho21–26,9 g
Hembra17,4–27,5 g
Eurilaimo Africano
Distribución fragmentaria en bosques y arbolado denso adecuados del África subsaharianaGuía de observación en su distribución natural
Busque tres rasgos a la vez
No se base en un solo rasgoLa anchura se aprecia mejor de frente o desde abajo; compruébela con la cola corta.
Falta el área pectoral rojiza marcada de otros eurilaimos; el centro abdominal puede ser más liso.
Las plumas dorsales ocultas pueden descubrirse al exhibirse. No espere igual sonido y aspecto en todo vuelo cotidiano.
Comparar macho y hembra
 HembraMacho
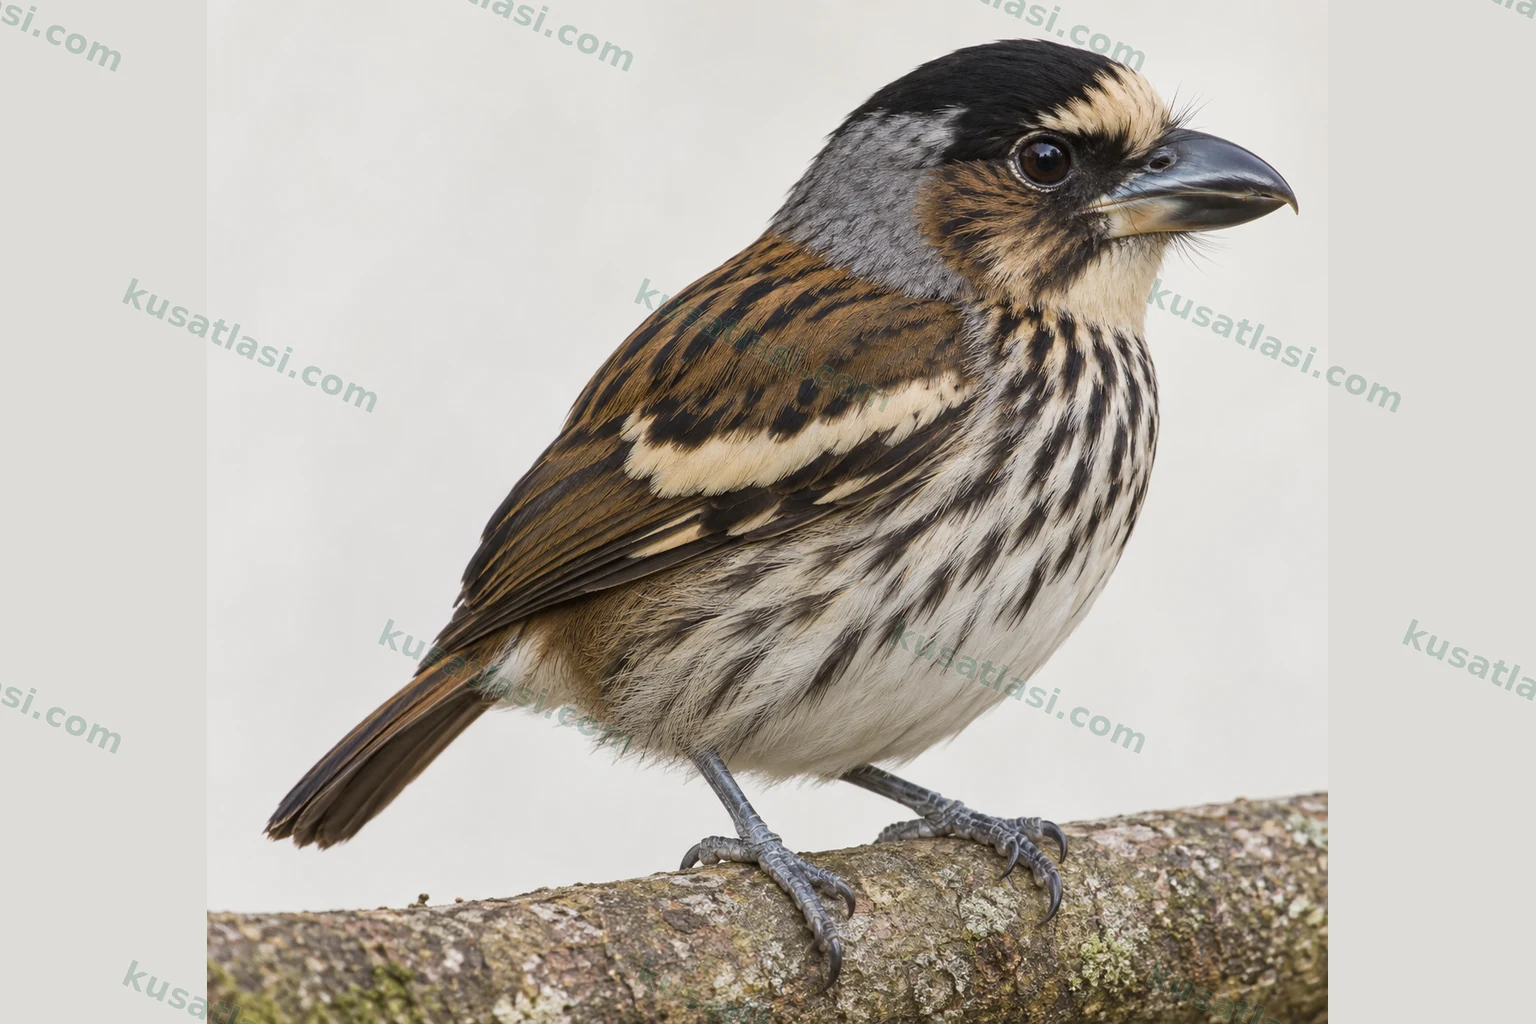
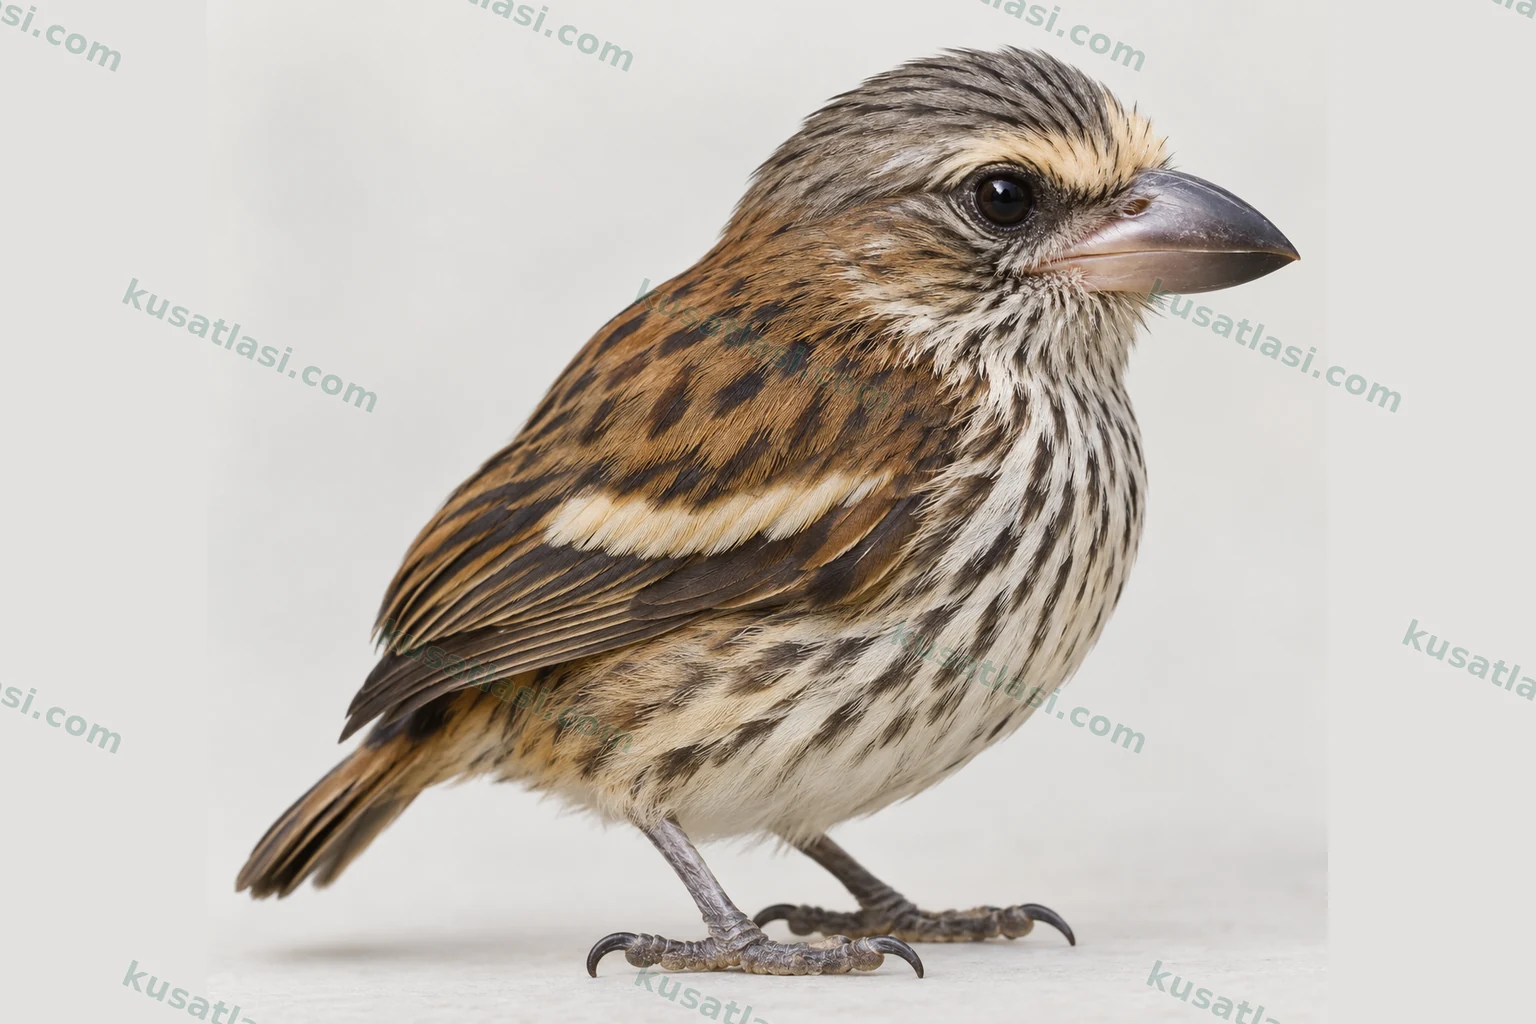
Con buena luz pueden ayudar coronilla negra masculina y femenina más apagada finamente estriada. Mantenga variación geográfica y de sombra; jóvenes pueden parecer hembras. Oscuridad o transporte de alimento solos no sexan con certeza.
¿Dónde buscarlo en su distribución natural?
Observe el bosque ribereño, el matorral denso y el arbolado de tierras bajas desde el camino existente. No fuerce la salida de un ave inmóvil en su posadero ni abra la vegetación alrededor de un nido colgante.
Es principalmente residente en África austral. SABAP1 informa cría de agosto–febrero en Zimbabue, concentrada octubre–diciembre, y puesta septiembre–diciembre en KwaZulu-Natal. El sonido cambia la detección; no es probabilidad común de presencia o cría para toda África.
Enero
Principalmente residente; el sonido puede cambiar la detección. Dentro del intervalo agosto–febrero de registros reproductivos del atlas de Zimbabue. No es porcentaje de probabilidad de presencia o migración.
Febrero
Principalmente residente; el sonido puede cambiar la detección. Dentro del intervalo agosto–febrero de registros reproductivos del atlas de Zimbabue. No es porcentaje de probabilidad de presencia o migración.
Marzo
Principalmente residente; el sonido puede cambiar la detección. Fuera del intervalo reproductivo principal del atlas de Zimbabue; no implica ausencia de cría en toda África. No es porcentaje de probabilidad de presencia o migración.
Abril
Principalmente residente; el sonido puede cambiar la detección. Fuera del intervalo reproductivo principal del atlas de Zimbabue; no implica ausencia de cría en toda África. No es porcentaje de probabilidad de presencia o migración.
Mayo
Principalmente residente; el sonido puede cambiar la detección. Fuera del intervalo reproductivo principal del atlas de Zimbabue; no implica ausencia de cría en toda África. No es porcentaje de probabilidad de presencia o migración.
Junio
Principalmente residente; el sonido puede cambiar la detección. Fuera del intervalo reproductivo principal del atlas de Zimbabue; no implica ausencia de cría en toda África. No es porcentaje de probabilidad de presencia o migración.
Julio
Principalmente residente; el sonido puede cambiar la detección. Fuera del intervalo reproductivo principal del atlas de Zimbabue; no implica ausencia de cría en toda África. No es porcentaje de probabilidad de presencia o migración.
Agosto
Principalmente residente; el sonido puede cambiar la detección. Dentro del intervalo agosto–febrero de registros reproductivos del atlas de Zimbabue. No es porcentaje de probabilidad de presencia o migración.
Septiembre
Principalmente residente; el sonido puede cambiar la detección. Dentro del intervalo agosto–febrero de registros reproductivos del atlas de Zimbabue. Dentro del intervalo de puesta comunicado para KwaZulu-Natal. No es porcentaje de probabilidad de presencia o migración.
Octubre
Principalmente residente; el sonido puede cambiar la detección. Dentro del intervalo agosto–febrero de registros reproductivos del atlas de Zimbabue. Mes de concentración de registros en esta región. Dentro del intervalo de puesta comunicado para KwaZulu-Natal. No es porcentaje de probabilidad de presencia o migración.
Noviembre
Principalmente residente; el sonido puede cambiar la detección. Dentro del intervalo agosto–febrero de registros reproductivos del atlas de Zimbabue. Mes de concentración de registros en esta región. Dentro del intervalo de puesta comunicado para KwaZulu-Natal. No es porcentaje de probabilidad de presencia o migración.
Diciembre
Principalmente residente; el sonido puede cambiar la detección. Dentro del intervalo agosto–febrero de registros reproductivos del atlas de Zimbabue. Mes de concentración de registros en esta región. Dentro del intervalo de puesta comunicado para KwaZulu-Natal. No es porcentaje de probabilidad de presencia o migración.
Nido, huevo e incubación
Ambos sexos pueden construir un nido ovalado o en forma de bolsa que cuelga de una rama baja y tiene entrada lateral. Las cuentas regionales describen uno–tres huevos y una incubación de la hembra de 16–17 días. Ambos sexos pueden alimentar a las crías; los tres jóvenes de un nido exitoso de Golwe salieron con edades de 14–16 días. Esta pequeña muestra local no fija un plazo de desarrollo para todas las poblaciones ni señala el final del cuidado.
El sonido mecánico fuerte de exhibición procede de plumas de vuelo que vibran con el aire. Chocar alas no es el mecanismo principal. También hay vocalizaciones verdaderas cortas; no toda llamada es alar.
No reproduzca grabaciones para atraer a las aves; observe en silencio, especialmente cerca de los nidos.
Información de la especie
Identificación rápida
El Eurilaimo Africano, Smithornis capensis, es un ave pequeña y compacta, de color pardo y blanco, que puede pasar fácilmente inadvertida entre árboles densos. Deben valorarse en conjunto su cola corta, el dorso y las partes inferiores listados y el pico cuya anchura resulta especialmente evidente desde abajo. El centro de las partes inferiores permanece más liso y claro, mientras destacan las estrías oscuras del pecho y los flancos. Puede quedarse inmóvil en una rama durante mucho tiempo y dar la impresión de que no hay ningún ave; la identificación no debe limitarse a buscar movimiento.
Durante la exhibición puede describir un círculo cerrado y regresar al posadero. Las plumas blancas del dorso, ocultas en gran medida durante la postura normal, pueden levantarse y producir un destello claro en ese vuelo. Sin embargo, un destello blanco o un sonido mecánico no bastan para confirmar la especie sin ver al ave. Otras especies parecidas del mismo género también realizan vuelos de exhibición. La comparación más útil comprueba en el mismo individuo el pico ancho, las proporciones compactas, las estrías del pecho y la presencia o ausencia de una zona pectoral rojiza.
Aspecto general y postura
El dorso y la zona de las alas tienen tonos pardos cálidos, con estrías oscuras en la espalda. Las puntas crema claro o ante de algunas plumas alares pueden sugerir una franja pálida. Las partes inferiores son principalmente blanquecinas; los lados del pecho y los flancos pueden presentar tonos claros más cálidos y estrías oscuras. Que el centro del vientre sea más liso no significa que toda la parte inferior carezca de marcas. Las sombras de las hojas deben distinguirse de las estrías reales, comprobando de nuevo el dibujo cuando el ave cambie de ángulo.
La anchura del pico puede no apreciarse plenamente en una vista lateral. Desde abajo o desde un ángulo frontal adecuado se percibe mejor su forma ancha y aplanada. No es necesario hacer volar al ave para conseguir esa vista: es preferible esperar un movimiento natural. La cola corta y las proporciones compactas de cabeza y cuerpo ayudan a separarla de muchos insectívoros esbeltos y alargados. El ahuecamiento de las plumas, el ángulo y una rama interpuesta pueden alterar esas proporciones; la longitud de cola visible en una fotografía no constituye por sí sola una medida.
Las formas geográficas pueden variar en el tono de color. En lugar de asignar una subespecie con certeza a partir de una única iluminación, se anotan juntos el lugar de observación y el patrón realmente visto.
Machos, hembras y jóvenes
La cuenta especializada actual describe al macho adulto con píleo negro, frente ante pálido y nuca más gris. La hembra es semejante, pero el píleo puede ser gris más apagado y tener finas estrías oscuras. Algunas formas geográficas presentan especialmente esa coronilla más clara en la hembra. Estas diferencias requieren buen ángulo e iluminación. No todo ejemplar cuya coronilla parece negra a la sombra de las hojas es macho; la del macho también puede parecer más clara bajo luz intensa.
Los jóvenes pueden parecerse en general a la hembra, con tonos cálidos claros de la frente y estrías del píleo menos marcados. No se trata de una clave detallada para determinar la edad en días. Las plumas desordenadas o una ocultación breve tras abandonar el nido no proporcionan por sí solas una edad exacta. Las medidas de crecimiento de un estudio científico de pollos tampoco son longitudes adultas aplicables a todas las aves fotografiadas. Ver realmente que un progenitor alimenta al joven puede apoyar la interpretación del plumaje; la simple cercanía de otra ave no demuestra parentesco.
Los estudios reproductores distinguen la incubación de la hembra y la participación de ambos sexos en la alimentación de los pollos. Por tanto, no se llama macho a todo individuo que transporta comida basándose solo en esa conducta. Deben considerarse juntos el aspecto del píleo, el ángulo y el comportamiento del individuo seguido. Si no puede asignarse el sexo con fundamento, registrar un adulto resulta más útil que convertir forzosamente la incertidumbre en macho o hembra.
Aspecto en vuelo
La exhibición puede consistir en un giro cerrado alrededor de una rama y un regreso al posadero. Al quedar expuestas, las plumas blancas del dorso pueden producir un breve destello dentro del bosque oscuro. No es el mismo aspecto que el de un vuelo ordinario de búsqueda de alimento. La ausencia de sonido de exhibición o de la misma zona blanca durante un desplazamiento cotidiano no excluye la especie. La cola corta, el pico ancho y el pecho listado que se observan en el posadero completan la vista en vuelo.
La investigación experimental demostró que el sonido de exhibición procede de determinadas plumas de vuelo que vibran con la corriente de aire. Este mecanismo difiere de la explicación simplificada de unas alas que chocan entre sí. Los movimientos alares de esa exhibición no se convierten en velocidad de vuelo ordinario ni de migración. El movimiento de la punta del ala medido en el estudio no significa que todo el cuerpo avance a esa velocidad.
Voz y comportamiento
La vibración mecánica fuerte de la exhibición facilita detectar a la especie. Una comparación escrita como «krrrr» aproxima su estructura, pero no reproduce por completo el ritmo, la intensidad ni el tono del sonido natural. Que este sonido se produzca con las alas no significa que todas las llamadas del ave tengan origen alar. Los investigadores también describieron vocalizaciones verdaderas más cortas, audibles a poca distancia antes de la exhibición. Ambos tipos de sonido deben mantenerse separados en la explicación.
Cuando no realiza la exhibición, el ave puede quedarse inmóvil entre la vegetación y pasar inadvertida. El atlas del África austral señala que el mayor número de registros de primavera y principios del verano podría relacionarse con una actividad sonora más intensa. Oírla más no demuestra necesariamente que ese mes lleguen más individuos desde fuera. Para contemplar una exhibición natural no hace falta reproducir grabaciones, provocar al ave ni cortar ramas. Dejar que un individuo silencioso permanezca en su posadero ofrece una vista más prolongada para identificarlo sin alterar su uso del lugar.
Especies similares
1. Smithornis rufolateralis puede confundirse por sus proporciones compactas y su comportamiento de exhibición parecido. La comparación de Cornell señala la zona rojiza del pecho como una de las marcas útiles para separar ambas especies. El Eurilaimo Africano carece de esa zona pectoral rojiza bien definida; deben comprobarse juntas las estrías oscuras sobre fondo claro y la anchura del pico. Ambos congéneres pueden producir sonidos de exhibición con las alas, de modo que el sonido mecánico por sí solo no decide la especie.
2. Smithornis sharpei es otro congénere próximo con el que conviene comparar. Cornell también menciona la ausencia de aspecto rojizo en el pecho al separar de él al Eurilaimo Africano. La coronilla más gris de una hembra de Eurilaimo Africano no basta para identificarla como Smithornis sharpei. Es preciso ver conjuntamente pecho, alas y pico; una vista insuficiente no recibe una etiqueta específica solo porque un color coincida con el nombre de otra especie.
Distribución mundial
El Eurilaimo Africano ocupa de manera discontinua bosques y arbolados densos adecuados del África subsahariana. Las zonas occidentales en torno a Sierra Leona, Liberia y Ghana; Camerún, Gabón y la cuenca del Congo en el centro; y Uganda, Kenia, Tanzania, Zambia, Malawi, Mozambique y otros arbolados favorables del este y el sur forman el contexto regional amplio. También se describen formas geográficas en Angola y Zimbabue. Esta distribución no significa que todos los terrenos intermedios estén ocupados de forma continua.
En la región austral son importantes los lugares de cubierta densa de Limpopo y KwaZulu-Natal y el este de Esuatini. Los registros del entorno del Zambeze y el nordeste de Namibia deben interpretarse teniendo en cuenta el carácter local y fragmentado de los lugares. Los atlas describen un ave fácil de pasar por alto, por lo que pocos registros no siempre equivalen a pocas aves. A la inversa, la ausencia de registros tampoco permite crear una extensa zona de residencia segura. Las celdas de predicción y observación del mapa no constituyen la misma prueba que un área de reproducción confirmada.
Situación en su área natural
La evaluación global de 2024 le asigna Preocupación Menor, LC. Para la región de evaluación de Sudáfrica, Lesoto y Esuatini, la categoría de 2025 es Vulnerable, VU. El estado global y el de una región menor pueden ser diferentes. La pérdida de sotobosque denso y la fragmentación forestal son importantes en la evaluación regional. Que una fuente antigua no reconociera amenazas globales no resta importancia a la pérdida local de hábitat.
La cuenta regional actual distingue la contracción del área prevista mediante modelos, los cambios del hábitat y la probabilidad de registro. Un porcentaje de reducción del área modelizada no se presenta como pérdida de individuos contados directamente. La continuidad de los registros en espacios protegidos tampoco demuestra que todas las áreas no protegidas se encuentren en la misma situación. Para afirmar que la población está segura deben considerarse el estado de la cubierta y los estudios repetidos, en vez de una sola observación satisfactoria.
Migración
Las cuentas especializadas y los atlas del África austral tratan la especie como básicamente residente; no se ha verificado una ruta intercontinental regular. Que se oiga o registre más en determinada estación no constituye automáticamente una prueba migratoria. Las exhibiciones de cría pueden facilitar la detección de aves que pasan inadvertidas cuando están calladas. Por eso, presencia y probabilidad de detección no se representan como conceptos equivalentes en el calendario.
Tampoco se supone que cada individuo permanezca todo el año en la misma rama o en el mismo fragmento pequeño de bosque. En este trabajo no se verificaron rutas individuales precisas entre poblaciones, y no se unen países mediante líneas inventadas. Los registros reproductores de Zimbabue del atlas austral y los meses de puesta de KwaZulu-Natal conservan sus respectivos contextos regionales. El intervalo de meses de un país no se aplica idénticamente a todas las poblaciones del oeste y el este de África.
Hábitat de cría
El Eurilaimo Africano se asocia a matorrales densos, bosques ribereños y sotobosques arbolados. También puede utilizar el estrato medio de los bosques perennifolios de tierras bajas. La mera presencia de árboles altos no explica la adecuación del lugar; importan también la continuidad y la estructura de la cobertura que utiliza. La evaluación regional actual considera la degradación del sotobosque y el aislamiento de los fragmentos forestales. Un solo árbol grande en un parque abierto no equivale al hábitat de un arbolado denso natural.
Lugar del nido
Ambos sexos pueden construir el nido ovalado o en forma de bolsa que cuelga de una rama baja. La entrada es lateral; entre los materiales figuran corteza, hojas secas, ramitas, hierba y raicillas. Fragmentos de telaraña también pueden mantener unida la estructura. La cuenta regional ofrece ejemplos situados aproximadamente a 1,5–3 m del suelo, sin que esa altura sea obligatoria para todos los nidos. Puede encontrarse cerca de un arroyo o una franja húmeda, pero no se afirma que siempre cuelgue sobre agua corriente.
La cuenta regional describe normalmente uno–tres huevos y una incubación de la hembra de unos 16–17 días. Un pequeño estudio de campo en el nordeste de Sudáfrica observó incubación femenina y alimentación de los pollos por ambos sexos. Los tres pollos de un nido exitoso, nacidos en días distintos, abandonaron el nido con edades de 14–16 días (observación de Golwe de 2007; no es un plazo fijo para todas las poblaciones). La incubación y el desarrollo dentro del nido son intervalos distintos que no deben intercambiarse.
Uso cotidiano del espacio
Puede permanecer inmóvil mucho tiempo en un posadero y después buscar alimento entre la cobertura o realizar vuelos cortos. Es particularmente difícil detectarlo en matorrales ribereños densos. Observar los movimientos naturales desde un sendero existente proporciona una identificación más adecuada que intentar obligarlo a salir. Si se encuentra un nido colgante, no se corta la vegetación de alrededor para exponerlo, no se aproxima nadie a la entrada y no se tocan los pollos. Que parezca vacío desde lejos no significa que realmente lo esté; la hembra silenciosa puede seguir dentro.
¿Qué come?
Las cuentas especializadas describen una dieta compuesta principalmente por pequeños invertebrados. Entre los ejemplos citados figuran insectos, saltamontes, orugas y arañas. El pico ancho no implica dependencia de un solo grupo de presas. No se dice que coma únicamente insectos voladores ni exclusivamente animales del suelo. Las listas regionales no representan la dieta completa de todas las poblaciones africanas; las presas disponibles pueden cambiar con la cobertura utilizada y la estación.
El estudio sudafricano de pollos observó entregas de presas pequeñas, en su mayoría de cuerpo blando. Las orugas, mariposas pequeñas, polillas y arañas pertenecen al contexto de esa observación. Esos registros no indican que todos los adultos elijan solo esos alimentos durante todo el año ni que existan porcentajes constantes de presas en todos los nidos. Si un pequeño objeto del pico no puede distinguirse, se registra su forma general en lugar de asignarle una especie exacta de insecto.
¿Cómo caza?
La cuenta regional especializada describe alimentación en el suelo, entre los árboles y, en ocasiones, en vuelo. Se pueden observar salidas hacia una presa desde el entorno de un posadero bajo, movimientos dentro de la cobertura y el regreso a una rama. El vuelo circular de exhibición no es la misma conducta que un vuelo de captura; sin ver realmente una presa transportada, no se anota como caza cada giro corto. El estrato vegetal y el lugar de captura pueden registrarse por separado.
La contribución del adulto que lleva alimento a un pollo se evalúa para el periodo observado de verdad. Que el macho transportase más comida en un estudio de campo no significa que la hembra nunca alimentase. El predominio masculino en un nido tampoco se convierte en un porcentaje invariable para toda la especie. Retirar hojas y ramas para ver mejor la entrada puede alterar el ritmo natural de entregas; el número de presas no vistas no debe registrarse como cero presas.
El sonido de exhibición procede de las plumas del ala
Un estudio experimental publicado en 2016 examinó el origen del marcado sonido mecánico del vuelo de exhibición del Eurilaimo Africano. Las imágenes de alta velocidad, el sonido sincronizado y los ensayos en túnel de viento apoyan la vibración de determinadas plumas de vuelo por la corriente de aire. El choque de las alas entre sí no es el mecanismo principal que muestran los resultados. Explicar cómo se produce el sonido y por qué evolucionó esa comunicación son preguntas distintas; las explicaciones propuestas para la segunda no se presentan como conclusiones definitivas.
Las plumas blancas no se ven en todas las posturas
Las plumas blancas del dorso que quedan expuestas durante la exhibición pueden permanecer ocultas cuando el ave está posada normalmente. El relato de campo del autor del estudio también menciona ese breve destello blanco. Si no se ve una gran zona blanca en un ave de la rama, no debe elegirse inmediatamente otra especie. Comparar al mismo individuo posado y en exhibición es más fiable que esperar un aspecto idéntico al contrastar fotografías independientes.
Pocos nidos no proporcionan una tasa de toda la especie
De los cuatro nidos activos seguidos en Golwe en 2007, uno produjo con éxito tres jóvenes. El estudio aporta registros valiosos sobre pérdidas de nidos y cuidados, pero una muestra pequeña y local no representa el éxito reproductor de toda África. En esa investigación incubó la hembra y ambos sexos alimentaron a los pollos. Que un adulto llevase más presas no significa que el otro no desempeñase un papel en el cuidado.
Frecuencia de registros y aumento numérico son distintos
El ave puede quedarse inmóvil mucho tiempo bajo la cobertura forestal, pero resulta más fácil detectarla cuando se exhibe. La explicación del aumento de registros de primavera y principios del verano en los atlas tiene en cuenta también la mayor actividad sonora. Ese aumento no equivale directamente a migración ni a más parejas reproductoras. La categoría global LC y la VU de la región austral se refieren asimismo a escalas diferentes; ver un individuo en un lugar no determina el estado de conservación de toda la región.