Aves do mundo Estatuto UICNLC · Pouco PreocupanteUICN global. BirdLife v10 (2025); correspondência do táxon AviList 2026 / IOC 15.2; verificado: 29.10.2026. O ano da lista não é a data de avaliação da espécie. Fonte e método · BirdLife OrdemPasseriformesPasseriformes FamíliaFurnariidaeFurnariidae
Cacholote-pardo
Pseudoseisura gutturalis
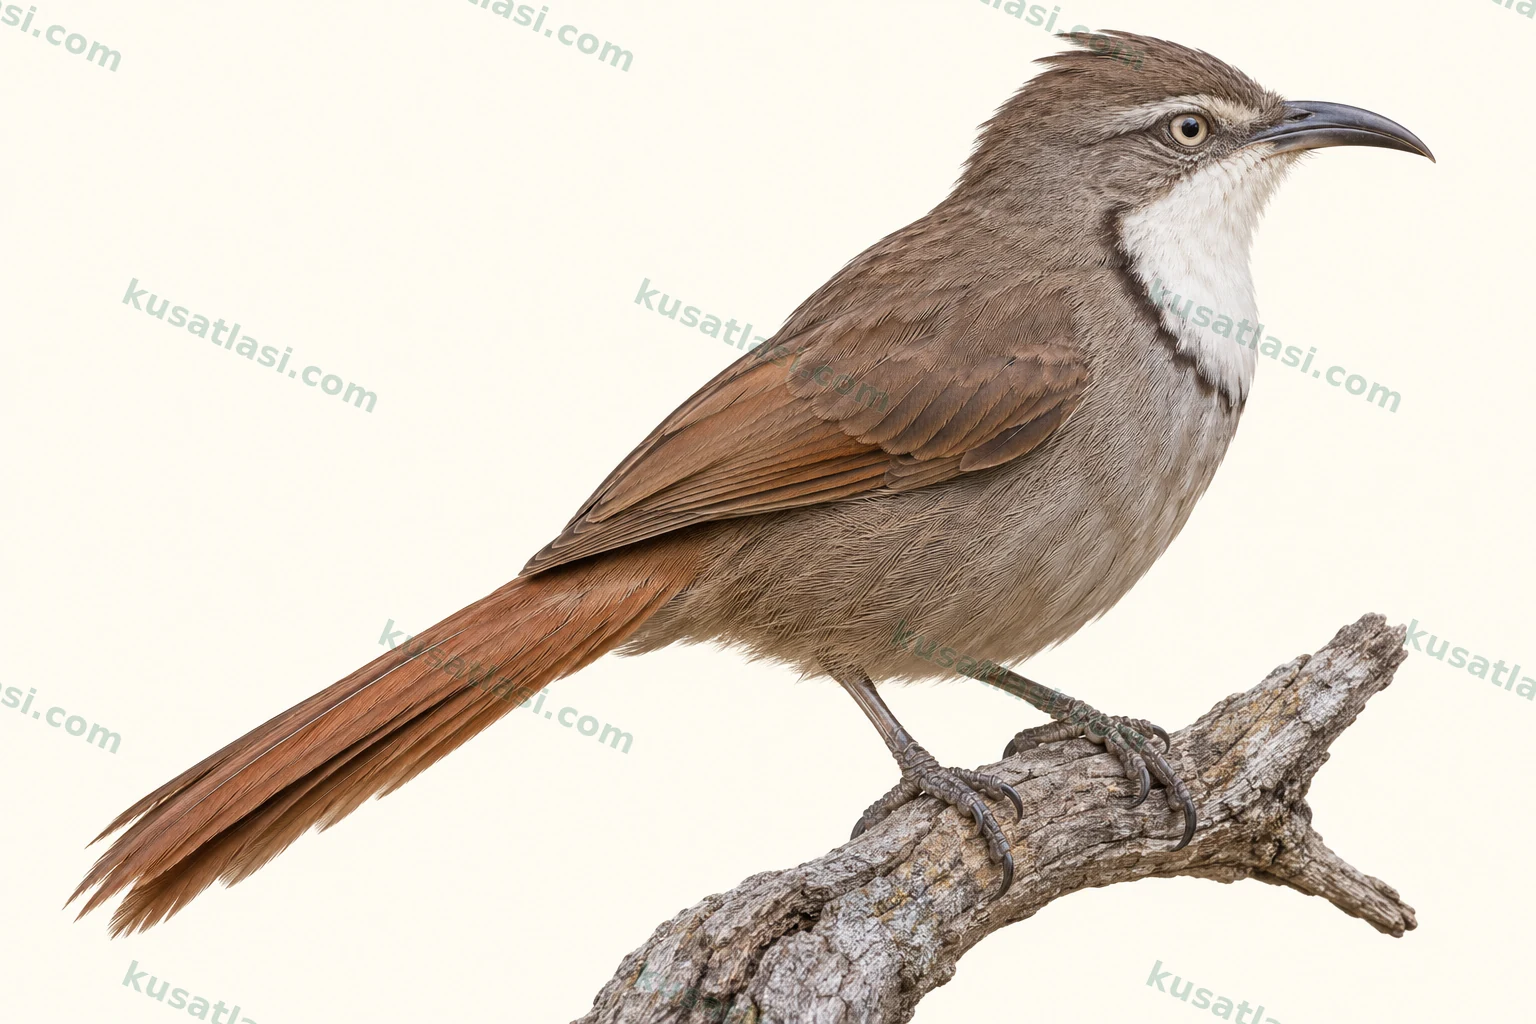
No matagal seco argentino: corpo robusto cinzento-acastanhado, pequena poupa e garganta esbranquiçada.
Biometria
Comprimento
Macho22–23 cm
Fêmea22–23 cm
Valor comum da espécie
Comprimento da asa
Macho10,23 cm
Fêmea10,23 cm
Valor comum da espécie
Peso
MachoDados indisponíveis
Fêmea66,6 g
Cacholote-pardo
Argentina: matagais do Monte e da PatagóniaGuia de observação na distribuição natural
Procure três características em conjunto
Não decida com base num único sinalPoupa curta, plumagem acinzentada e garganta esbranquiçada em conjunto.
Procura alimento no chão; duetos fortes em pontos altos e expostos.
Construção volumosa e fechada de ramos, com túnel de entrada.
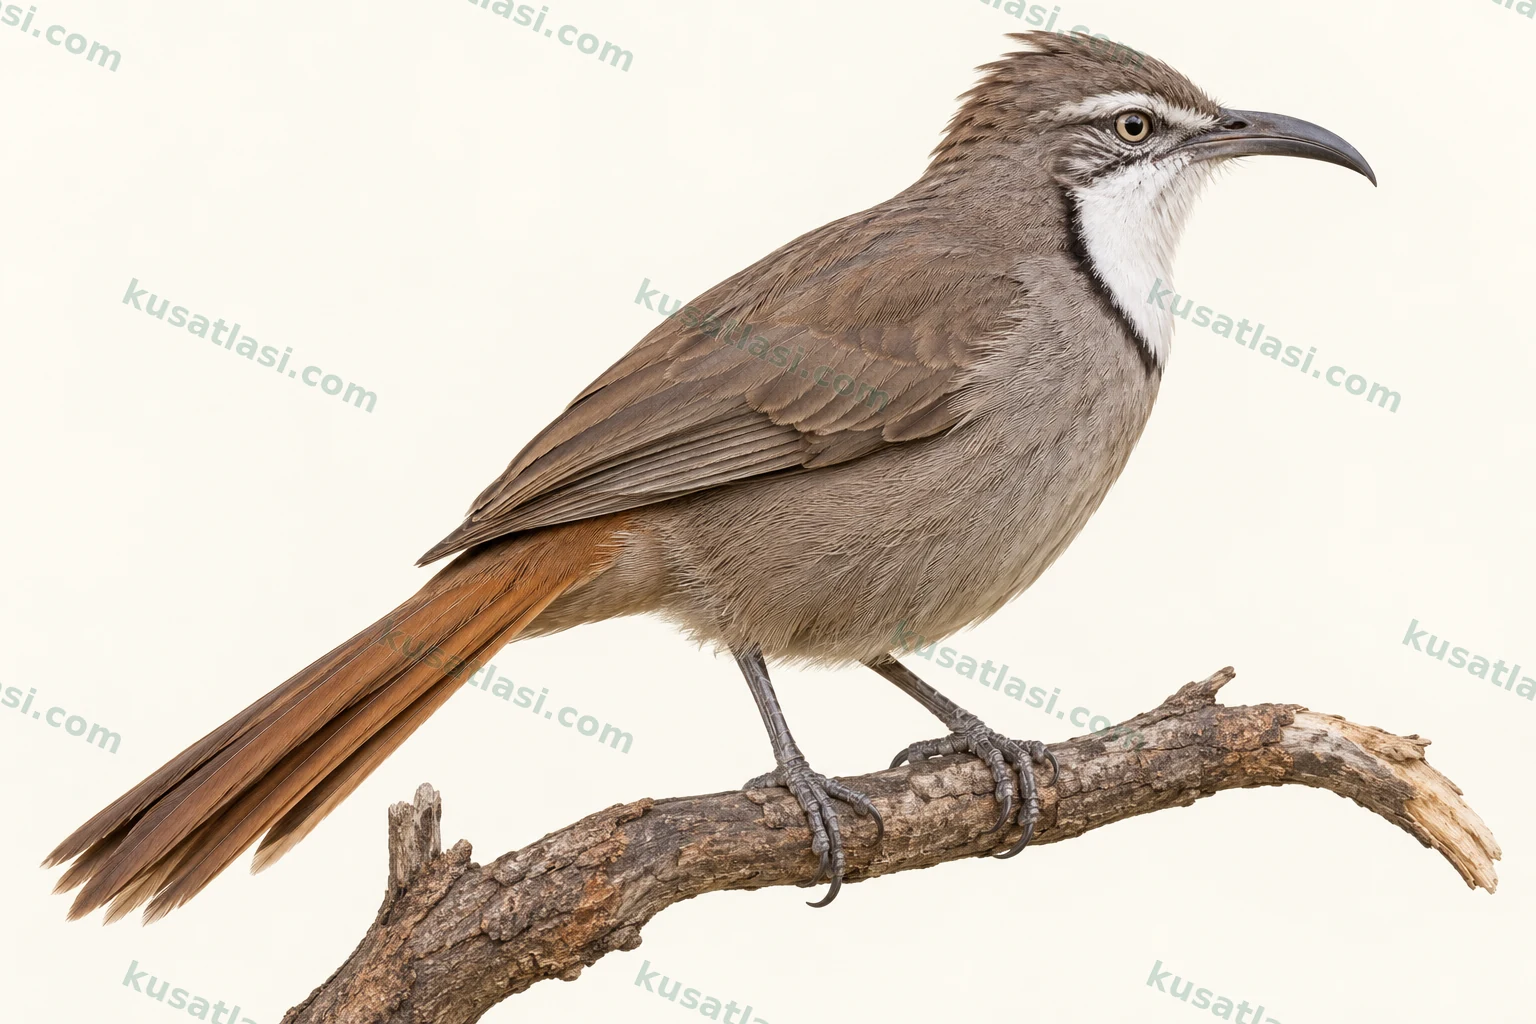
Comparar macho e fêmea
 FêmeaMacho
Não se confirmou uma chave visual detalhada e fiável para distinguir os sexos; a população do norte pode ser mais clara.
Onde procurar na sua distribuição natural?
Matagal seco pedregoso, Monte com cactos e estepe patagónica.
Residente. Em Cafayate registaram-se ninhos com postura completa de finais de outubro a inícios de fevereiro; os registos patagónicos incluem outras datas. Datas reprodutivas locais, não um calendário migratório regular.
Janeiro
Dados indisponíveis
Fevereiro
Argentina: Cafayate: últimos ninhos com postura completa e novos registos de crias no início de fevereiro.
Março
Dados indisponíveis
Abril
Dados indisponíveis
Maio
Dados indisponíveis
Junho
Dados indisponíveis
Julho
Dados indisponíveis
Agosto
Dados indisponíveis
Setembro
Argentina: Puerto Madryn: ovos de setembro documentados em 2007.
Outubro
Argentina: Cafayate: os registos locais de ninhos com postura completa começam no final de outubro.
Novembro
Dados indisponíveis
Dezembro
Dados indisponíveis
Ninho, ovo e incubação
Três ou quatro ovos brancos. Os estudos indicam um mínimo de 18–20 dias de incubação e, conforme a localidade, 24–26 dias ou pelo menos 27 dias de permanência no ninho.
Notas longas, fortes, secas e rangentes; frequentes duetos alternados.
Não reproduza gravações para atrair aves; observe em silêncio, sobretudo perto dos ninhos.
Informações da espécie
Identificação rápida
O Cacholote-pardo Pseudoseisura gutturalis é um furnarídeo robusto cinzento-acastanhado dos matos secos do Monte e da Patagónia argentinos. A pequena poupa, a garganta esbranquiçada e a plumagem mais cinzenta ajudam a separá-lo dos cacholotes mais ruivos e de poupa longa. Na ave a alimentar-se no chão observam-se juntos corpo compacto, bico forte e cauda. Pode subir a um ramo alto exposto, árvore seca ou poste para cantar ou descansar.
A garganta clara importa, mas uma mancha branca só não identifica. Conferem-se o limite da área clara sob a cabeça, a extensão da poupa e o tom cinzento-acastanhado. A população do norte ochroleuca pode ser mais clara e arenosa; gutturalis do sul parece mais escura.
Aspeto geral e postura
O corpo parece compacto e forte; a poupa é menos longa que em Pseudoseisura lophotes. Penas eriçadas alteram a cabeça, pelo que uma poupa escondida numa imagem não decide. O limite entre garganta clara e peito acinzentado vê-se melhor quando olha para cima ou vocaliza naturalmente. O caráter cinzento do castanho ajuda face a cacholotes ruivos.
No chão examina ervas secas e bases dos arbustos. Cabeça e bico baixam para intervalos entre pedras, ramos e plantas. Observações diretas perto de Puerto Madryn documentam escavar a terra, virar pequenos objetos e bicar repetidamente madeira seca.
Machos, fêmeas e jovens
As fontes consultadas não dão uma chave cromática adulta detalhada aplicável com segurança no campo. Não se chama macho a todo o indivíduo que canta ou transporta material só pelo comportamento. Estudos reprodutores registaram diretamente dois adultos a cuidar das crias. Acompanha-se a entrega de alimento sem confundir identidade sexual com padrão de penas visível.
O estudo de Cafayate, no norte argentino, detalha o desenvolvimento das crias. Ao nascer estão quase nuas, com pele rosada e olhos fechados; têm penugem cinzenta fina na cabeça, asas e uropígio. Entre o sexto e o sétimo dia aparecem bainhas das penas e os olhos abrem parcialmente. Perto do nono, os olhos estavam completamente abertos e as penas alares começavam a sair das bainhas. São etapas das crias acompanhadas naquele estudo.
Perto do vigésimo ou vigésimo primeiro dia, o aspeto aproxima-se do adulto; pode haver penas escuras no limite inferior da garganta branca. Plumagem semelhante não prova capacidade de voo nem alimentação inteiramente independente. Adultos a alimentar jovens já fora do ninho foram documentados no norte e na Patagónia.
Aspeto em voo
Procura alimento sobretudo no chão e cobertura baixa; pode voar a um posto de canto alto ou outro arbusto. Veem-se corpo cinzento-acastanhado e cauda, enquanto garganta clara e poupa pequena podem desaparecer num relance. Não se confirmou uma única marca subalar como chave segura.
Os primeiros voos dos jovens não têm a destreza adulta habitual. Num ninho de Cafayate, um jovem voou depois de os adultos chamarem e passarem a um arbusto próximo, sendo alimentado perto nos dias seguintes. Em Puerto Madryn, outras crias surgiram primeiro no túnel e depois moveram-se sobre o ninho e arbusto de suporte para cobertura vizinha.
Voz e comportamento
O canto forte de notas secas e rangentes pode prolongar-se muito. Duas aves podem responder em dueto. A Cornell descreve chamadas tão secas que recordam pancadas em madeira. O posto de canto pode ser mais alto e aberto que o ponto alimentar; depois de vocalizar num poste ou árvore nua pode voltar ao chão.
Os casais podem colaborar na construção e cuidados. Na Patagónia observaram-se adultos a recolocar ramos caídos, acrescentar outros e levar casca ao fundo da câmara. Transportar comida e materiais são comportamentos diferentes. Registou-se também a retirada de sacos fecais durante o crescimento. A grande estrutura de ramos não fica, portanto, imutável depois de concluída.
Pode haver defesa e perseguição de outro adulto junto ao ninho. Um ataque invulgar não é apresentado como comportamento comum a todos os casais. Os investigadores distinguiram indivíduos pela muda e características visíveis; não supuseram que um visitante desconhecido fosse progenitor. Relacionar voz e plumagem com o comportamento real importa para um registo correto.
Espécies semelhantes
Pseudoseisura lophotes, Brown Cacholote, compara-se pela plumagem mais ruivo-acastanhada e poupa longa evidente. A Cornell destaca ainda olhos amarelos. No Cacholote-pardo procuram-se juntos plumagem mais cinzenta, poupa curta e garganta esbranquiçada.
Canastreiros patagónicos menores também podem ser castanhos, de cauda longa e alimentar-se no chão. Pseudasthenes patagonica foi estudado quanto aos ninhos na mesma região, mas não deve confundir-se com o corpo grande e robusto do cacholote. As suas durações de incubação e desenvolvimento num artigo partilhado não se transferem para aqui; comparam-se voz, forma da cabeça e escala corporal.
Distribuição mundial
É endémico da Argentina. O Monte seco e os matos do centro-sul argentino e da Patagónia constituem a área principal. Ochroleuca descreve-se no Monte norte e central, do oeste de Salta em direção a La Rioja e San Juan; gutturalis no centro-sul, de Mendoza, La Pampa e sul de Buenos Aires ao nordeste de Santa Cruz. A diferença clara–escura avalia-se com essa geografia.
Situação na área natural
A lista consultada indica Pouco Preocupante. Cafayate, em Salta, e Puerto Madryn, em Chubut, são dois exemplos distintos de estudos locais detalhados. Os cactus colunares de Cafayate não equivalem obrigatoriamente aos suportes arbustivos baixos de Puerto Madryn. O endemismo argentino não significa uso de todas as suas florestas húmidas ou de todas as alturas andinas; importa a estrutura real do habitat seco.
Deslocações
Considera-se residente, sem rota sazonal distante regular verificada. Em Cafayate encontraram-se ninhos de postura completa do fim de outubro ao início de fevereiro. Perto de Puerto Madryn documentaram-se ovos em setembro e, num trabalho mais recente, atividade desde o fim do inverno. São períodos locais distintos. Um ninho aparentemente vazio depois da reprodução não demonstra migração do casal para outro país.
Habitat de reprodução
Utiliza terreno pedregoso seco e arbustivo do Monte e cobertura de estepe patagónica. Os locais de Cafayate têm árvores dispersas, arbustos espinhosos e cactus colunares. Em Puerto Madryn dominam arbustos secos como Larrea e Condalia. O suporte do ninho pode variar com a comunidade vegetal local.
Local do ninho
Um túnel de entrada conduz à ampla câmara das crias no ninho fechado volumoso de ramos. Catorze de quinze ninhos ativos de Cafayate estavam em cactus colunares. Registaram-se três ou quatro ovos brancos. Entre encontrar a postura completa e a eclosão decorreram até 18–20 dias; interpretam-se como informação mínima de incubação, não duração medida desde começo conhecido. No norte, as crias ficaram 24–26 dias; dois acompanhamentos patagónicos posteriores deram pelo menos 27 dias.
Uso diário do espaço
Procura alimento no chão e cobertura baixa; o canto pode vir de pontos altos expostos. Os adultos continuam a alimentar jovens saídos nos arbustos próximos. O espaço de trabalho junto ao ninho fornece comida, ramos novos e casca; não se abre o túnel para observar.
O que come?
Invertebrados como insetos, aranhas e escorpiões são alimento principal; pode também capturar lagartixas e outros pequenos vertebrados. Das 902 presas levadas a dois ninhos perto de Puerto Madryn, os insetos foram cerca de 86 por cento em número. Partes menores incluíram aracnídeos, répteis, alimento de origem aviária e um registo de mamífero. São contagens de objetos para crias, não proporções em peso de toda a dieta adulta.
Como procura alimento?
Procura ativamente no chão, sob arbustos e entre ervas, ramos e pedras, podendo escavar. Viram-se grandes insetos Agathemera e lagartixas divididos em pedaços adequados às crias. Uma presa segura com o pé sobre pedra ou madeira dura pode ser trabalhada com movimentos fortes do bico. Outro acompanhamento em Cafayate também registou artrópodes e pequenos vertebrados para as crias; as listas dos dois sítios não se fundem num menu fixo.
Pode reutilizar materiais do grande ninho
Um ninho acompanhado em Puerto Madryn recebeu também material de outro antigo próximo. Cafayate registou igualmente reutilização de ramos de estruturas inativas. Nem todo o material é recém-cortado em cada tentativa. O exterior também pode ser reparado com ramos durante o uso. O fundo do ninho patagónico de 2007 teve ainda casca de choupo levada de um depósito de resíduos vizinho.
Podem existir objetos com aspeto de ornamentos
O estudo do norte encontrou penas de outras aves, tecido e restos artificiais brilhantes fora de alguns ninhos. Nem todos são material indispensável da câmara de ovos. Os investigadores registaram-nos como decorações exteriores e não determinaram qual sexo os colocou. Não se declara, portanto, uma exibição masculina certa.
A entrada pode relacionar-se com o vento local
Em Cafayate, as entradas olhavam sobretudo a nordeste, enquanto o vento dominante vinha de sul-sudeste. Os autores discutiram evitar o vento como explicação possível. A orientação foi observada; não houve experiência que provasse o vento como causa única. Não se conclui que todo o ninho argentino tenha de olhar a nordeste.
Trabalhos novos pormenorizam a permanência das crias
O único ninho patagónico de 2007 confirmou pelo menos 21 dias; não se tendo visto a saída exata, é um limite inferior. O acompanhamento do norte mais detalhado deu 24–26 dias e dois ninhos patagónicos posteriores pelo menos 27. Não se inventa uma média para escolher duração fixa da espécie. Intervalo de observação, localidade e saída realmente vista explicam juntos os resultados.