Oiseaux du monde Statut UICNLC · Préoccupation mineureCatégorie mondiale de l'UICN. BirdLife v10 (2025) ; correspondance taxonomique : AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L'année de la liste n'est pas la date d'évaluation de l'espèce. Source et méthode · BirdLife OrdreGruiformesGruiformes FamilleRallidaeRallidae
Râle bleuâtre
Rallus caerulescens
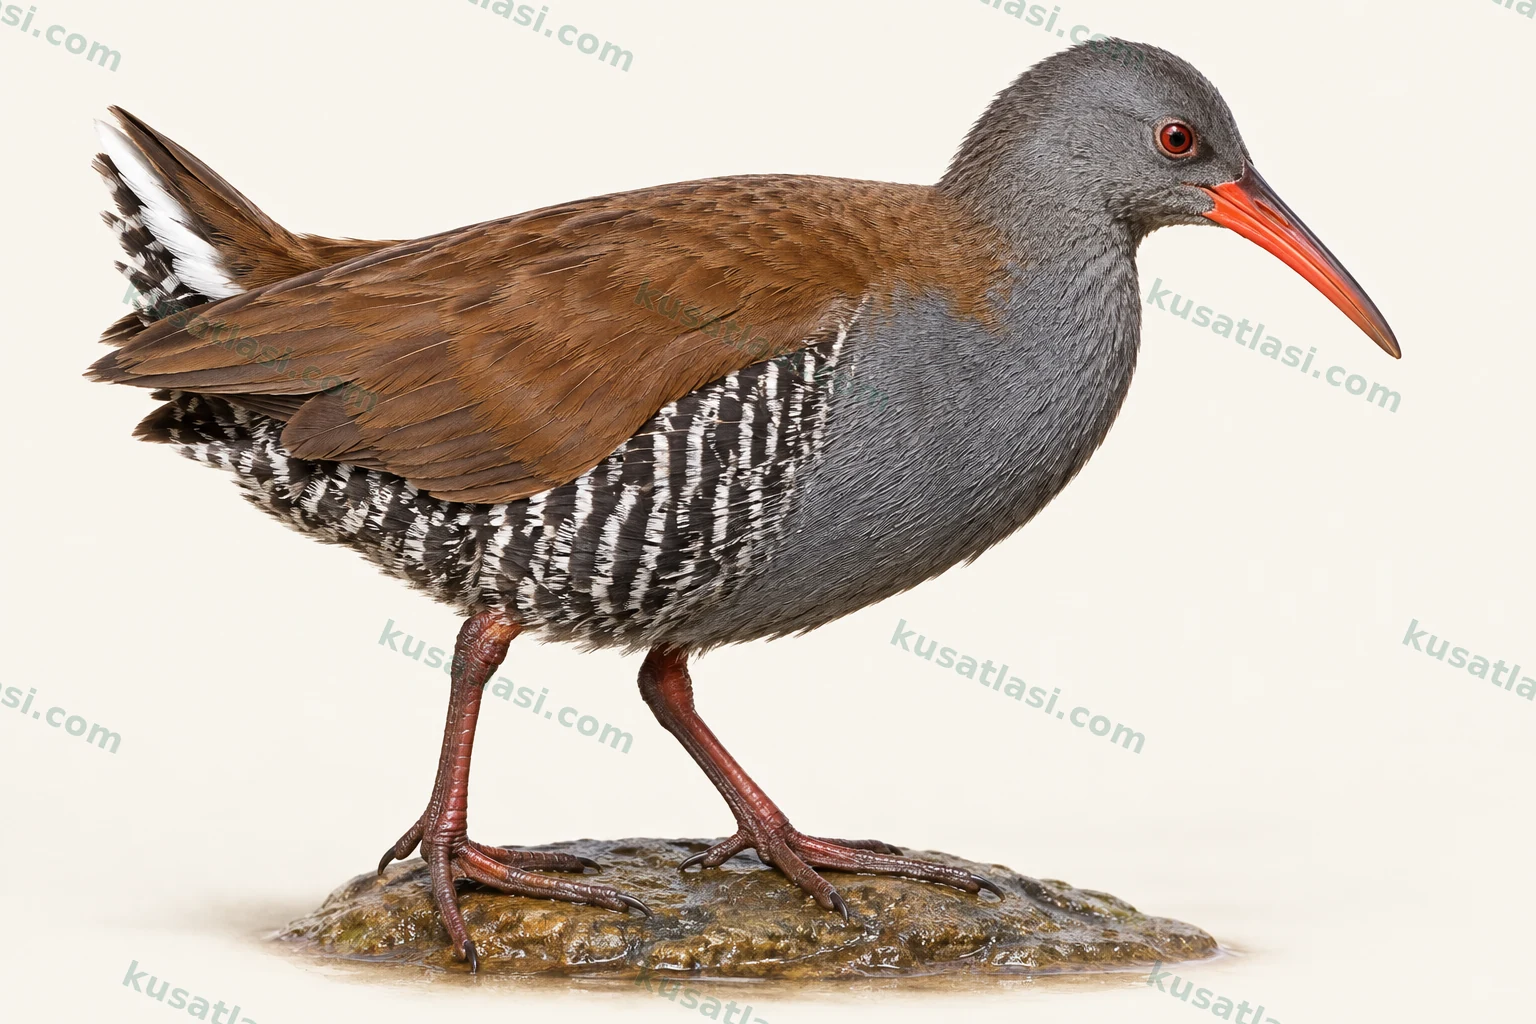
Long bec rouge et pattes rouges, face et poitrine grises, dos brun et flancs barrés de blanc et de noir. Il vit discrètement dans le couvert dense des zones humides.
Biométrie
Longueur
Mâle27–28 cm
Femelle27–28 cm
Valeur commune à l’espèce
Longueur de l’aile
Mâle11,9 cm
Femelle11,9 cm
Valeur commune à l’espèce
Poids
Mâle146–205 g
Femelle120–170 g
Râle bleuâtre
Zones humides à végétation dense d’Afrique subsaharienneGuide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreDistinguez le long bec rouge de l’adulte de ceux, courts, d’autres oiseaux des roseaux.
Voyez le devant gris et les flancs barrés transversalement sur le même individu.
Ne pas entendre de cris ne signifie pas l’absence ; ne pas voir de bec rouge ne permet pas d’écarter l’espèce sans considérer l’âge.
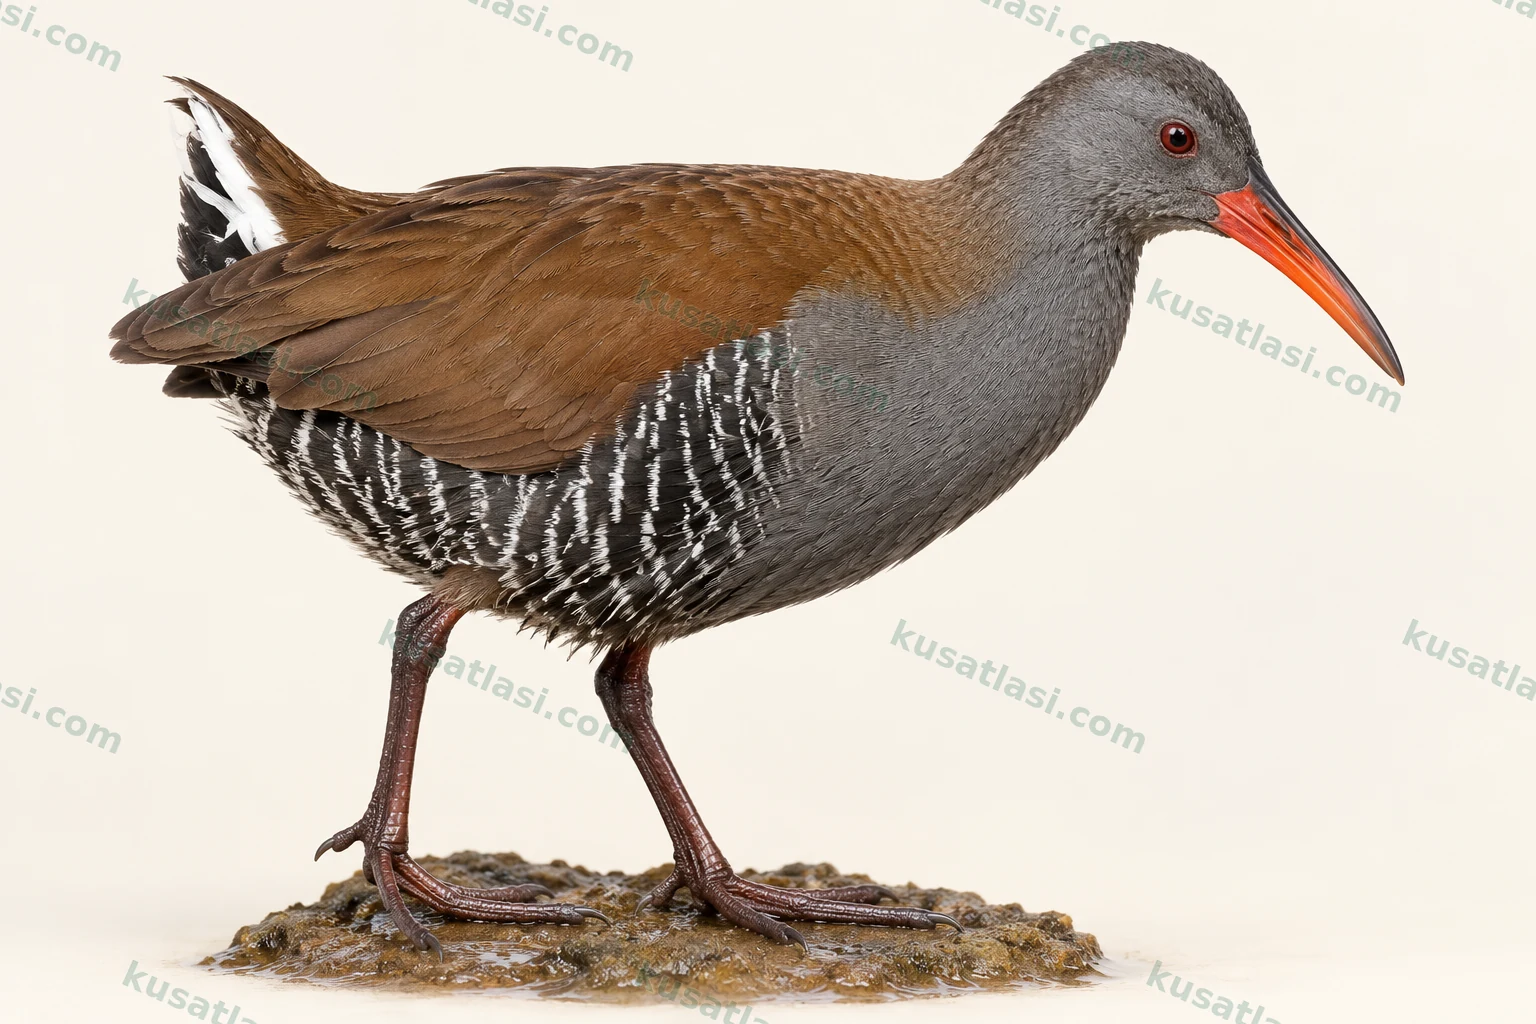
Comparer mâle et femelle
 FemelleMâle
Les adultes des deux sexes partagent le dessin fondamental ; les petites différences de taille et de bec ne permettent pas un sexage certain sur une photo. Bec et pattes sont sombres chez le jeune.
Où le chercher dans son aire naturelle ?
Observez eau peu profonde et vase près des roseaux sans écarter le couvert.
Ce sont les données régionales de reproduction de l’atlas daté d’Afrique australe, pas seulement la ponte ni une période commune à tout le continent.
Janvier
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Zimbabwe, SABAP1 : des données régionales de reproduction sont rapportées. Ancien Transvaal, SABAP1 : des données régionales de reproduction sont rapportées. KwaZulu-Natal, SABAP1 : des données régionales de reproduction sont rapportées.
Février
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Zimbabwe, SABAP1 : des données régionales de reproduction sont rapportées. Ancien Transvaal, SABAP1 : des données régionales de reproduction sont rapportées. KwaZulu-Natal, SABAP1 : des données régionales de reproduction sont rapportées.
Mars
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Zimbabwe, SABAP1 : des données régionales de reproduction sont rapportées. KwaZulu-Natal, SABAP1 : des données régionales de reproduction sont rapportées.
Avril
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Zimbabwe, SABAP1 : des données régionales de reproduction sont rapportées.
Mai
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Zimbabwe, SABAP1 : des données régionales de reproduction sont rapportées.
Juin
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Aucune date régionale vérifiée propre à ce mois n’est fournie ; cela ne signifie pas une absence locale.
Juillet
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Aucune date régionale vérifiée propre à ce mois n’est fournie ; cela ne signifie pas une absence locale.
Août
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Aucune date régionale vérifiée propre à ce mois n’est fournie ; cela ne signifie pas une absence locale.
Septembre
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Ancien Transvaal, SABAP1 : des données régionales de reproduction sont rapportées. KwaZulu-Natal, SABAP1 : des données régionales de reproduction sont rapportées.
Octobre
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Ancien Transvaal, SABAP1 : des données régionales de reproduction sont rapportées. KwaZulu-Natal, SABAP1 : des données régionales de reproduction sont rapportées.
Novembre
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Ancien Transvaal, SABAP1 : des données régionales de reproduction sont rapportées. KwaZulu-Natal, SABAP1 : des données régionales de reproduction sont rapportées.
Décembre
Généralement sédentaire ; des déplacements locaux peuvent suivre des changements d’eau et de couvert. Les vocalisations modifient la probabilité de détection. Ancien Transvaal, SABAP1 : des données régionales de reproduction sont rapportées. KwaZulu-Natal, SABAP1 : des données régionales de reproduction sont rapportées.
Nid, œuf et incubation
La coupe peu profonde de feuilles, roseaux et herbes se trouve à couvert ; la description spécialisée donne 2–6 œufs et environ 20 jours d’incubation par les deux partenaires. Le premier vol a lieu à six–sept semaines ; marcher tôt ne signifie pas l’indépendance.
Des cris puissants et caractéristiques viennent du couvert ; des vocalisations conjointes des partenaires sont rapportées.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
Le Râle bleuâtre Rallus caerulescens vit parmi les plantes denses des zones humides et porte un long bec rouge. Chez l’adulte, on distingue ensemble dessus brun, face et poitrine grises, et flancs barrés de noir et de blanc. Pattes et pieds sont rouges. Si seule une tête sort des roseaux, examinez bec, face et portion visible du corps sur le même oiseau. Tous les petits oiseaux discrets au bord de l’eau ne sont pas de la même espèce de râle.
Le bec long et fin peut se courber légèrement vers le bas ; il aide à le distinguer des autres oiseaux des roseaux au bec court et épais. L’organisation du dos brun et les barres des flancs importent aussi. L’oiseau peut rester brièvement sur la vase découverte avant de rentrer à couvert. Attendez sa sortie naturelle plutôt que compléter un dessin des flancs non observé. Sa voix caractéristique révèle souvent sa présence, mais il faut vérifier séparément qu’elle émane bien du même individu.
Aspect général et posture
Le dessus de la tête, le dos, le croupion et les ailes sont brun foncé. Front et côtés de la tête sont gris ; menton et gorge sont clairs, avant du cou et poitrine gris. Les barres transversales sombres et claires des flancs, du pourtour du ventre et du dessous de la queue diffèrent du devant gris. Un gris assombri à l’ombre ne signifie pas une poitrine noire. Le sens des barres aide à comparer les autres oiseaux des roseaux portant des stries longitudinales sombres sur le dos.
Le corps peut paraître comprimé latéralement, adapté au passage dans les étroits interstices des plantes. Sur la vase ouverte, tête et cou s’étendent vers l’avant ; à couvert, l’oiseau paraît plus ramassé. Les longs doigts peuvent se remarquer sur le sol mou ou les plantes. Quand les pattes sont dans l’eau, leur portion visible ne doit pas être prise pour leur longueur totale. Les lignes d’ombre des roseaux sur le corps se distinguent également du véritable dessin transversal du plumage.
Mâles, femelles et jeunes
Les deux sexes sont très semblables dans le dessin fondamental du plumage. Les fiches spécialisées décrivent la femelle comme un peu plus petite et au bec plus court ; cette différence moyenne ne suffit pas à sexer sûrement une photographie. On ne peut comparer des becs de deux têtes vues sous des angles différents.
Le jeune peut avoir le dessous plus brun que l’adulte ; son bec paraît noirâtre et ses pattes brun foncé. Exiger le bec rouge de l’adulte à tout âge serait donc faux. Un bec pâle seul ne prouve pas non plus le jeune âge : il faut considérer éclairage et équilibre des couleurs. Voir ensemble tête, dessous et zones nues renforce l’interprétation de l’âge. Déterminer l’espèce et déterminer l’âge ne se remplacent pas.
Même si un poussin peut se déplacer après l’éclosion, il n’a pas l’indépendance d’un adulte. Voir des jeunes près du nid ne montre ni un vol puissant ni la fin de l’aide alimentaire. Le premier vol est rapporté vers six–sept semaines de développement par la fiche régionale spécialisée ; ce délai ne se confond pas avec le premier jour hors du nid. L’apparence d’un oiseau dont on ignore la naissance ne donne pas un âge exact en jours.
Aspect en vol
Le vol peut s’observer lors du franchissement des trouées du couvert plutôt que pendant de longs circuits démonstratifs au-dessus des roseaux. Les descriptions régionales signalent que les pattes peuvent pendre en vol bas. Une brève vue de l’aile ouverte peut ne pas révéler tout le dessin du corps. N’appelez pas Râle bleuâtre tout oiseau de zone humide aux ailes sombres ; voyez si possible bec, devant gris et flancs barrés après la pose.
La direction d’un oiseau traversant la roselière décrit un déplacement quotidien. Ce n’est pas une preuve directe de migration lointaine ou de changement de route saisonnière. Aucun schéma établi de migration intercontinentale régulière n’est connu ; quelques vols locaux ne servent donc pas à tracer des flèches de pays en pays. Interpréter les couleurs sans préciser quelle face de l’aile est visible serait également incorrect.
Voix et comportement
Malgré sa discrétion dans le couvert, l’oiseau peut être détecté grâce à ses cris puissants et caractéristiques. Des vocalisations conjointes des partenaires et la défense territoriale sont rapportées. N’attribuez pas automatiquement une voix des buissons à un autre oiseau des roseaux visible au même moment. Suivre direction et répétitions peut aider ; diffuser un enregistrement pour l’attirer ou pénétrer dans les plantes n’est pas nécessaire. Une visite silencieuse ne prouve pas l’absence.
Il peut être actif au crépuscule, mais se déplace aussi le jour. Il peut avancer prudemment à couvert ; à découvert, les pas sont plus longs et réguliers. S’immobiliser ou regagner la végétation en cas de danger montre l’importance du refuge. Mouvements de la queue et extension de la tête peuvent donner plusieurs silhouettes au même individu lors d’une observation brève. Le classer ailleurs d’après une posture instantanée peut tromper.
La nage et la capacité à grimper aux tiges sont aussi rapportées. Cela n’en fait pas un oiseau passant tout son temps en eau libre ; sa dépendance au couvert dense demeure. Un couple peut défendre un territoire, mais quelques cris ne donnent pas seuls le nombre de couples. Un individu appelant depuis divers points, ou les échanges des partenaires, peuvent provoquer un surcomptage lors d’une courte visite.
Espèces ressemblantes
1. Crecopsis egregia se compare par son bec plus court, gris à base rougeâtre, ses pattes grises et son dessus fortement strié de sombre. Le long bec rouge adulte, le dos brun et les pattes rouges du Râle bleuâtre diffèrent. Si seule la tête est vue, le dessin du dos n’est pas deviné ; le jeune râle peut ne pas avoir le bec de couleur adulte.
2. Zapornia flavirostra est une espèce plus petite, au corps sombre, qui peut fréquenter les mêmes zones humides ; on relève ensemble bec jaune et pattes rouges. Le devant gris et les flancs barrés du Râle bleuâtre complètent son long bec rouge adulte. Les pattes rouges partagées ne suffisent pas : couleur du bec et dessin corporel sont nécessaires ensemble.
3. Rallus aquaticus peut être confondu dans les noms et les comparaisons photographiques en raison de sa morphologie proche. Les aires naturelles ne sont pas des copies d’un même vaste espace ; le Râle bleuâtre appartient à l’Afrique subsaharienne. L’identité ne se déduit pourtant pas de la seule géographie. Les différences de tête, gorge et dessus rapportées par les spécialistes se comparent avec de bonnes vues ; deux photos de poitrine grise sous des lumières différentes ne donnent pas une correspondance certaine.
Répartition mondiale
Le Râle bleuâtre est indigène d’Afrique subsaharienne. Son aire principale va de l’est de la République démocratique du Congo au Kenya et aux zones humides favorables plus au sud, jusqu’à la région du Cap en Afrique du Sud. Des populations plus clairsemées et locales sont signalées en Afrique occidentale et en Éthiopie. L’aire ne se lit pas comme une surface remplissant un pays : de grands vides peuvent exister là où manquent les eaux à végétation dense.
Situation dans l’aire naturelle
Les hautes terres du Zimbabwe, l’Okavango et ses marais associés, les réseaux aquatiques du nord-est de la Namibie et diverses zones humides intérieures ou côtières d’Afrique du Sud sont des exemples régionaux de l’atlas daté. Moins de données dans les régions sèches ne prouve pas une absence dans toutes leurs petites pièces d’eau. L’atlas cite aussi certaines eaux de zones sèches. La discrétion de l’oiseau empêche de prendre le nombre de vues pour une mesure directe du nombre réel d’individus.
Son évaluation mondiale est Préoccupation mineure. La perte des zones humides naturelles et les changements de couvert comptent néanmoins pour les populations locales. L’utilisation de petites zones humides artificielles ne démontre pas que toutes les roselières perdues puissent être remplacées avec les mêmes fonctions. Le modèle cartographique représente une aire potentielle, tandis que les exemples d’observations sous licence ouverte indiquent la position approximative de données datées ; ni l’un ni les autres ne sont un recensement de nids vérifié à chaque point.
Déplacements et migration
Aucun schéma commun appuyant une migration saisonnière régulière de grande ampleur n’est connu. Les changements locaux de niveau d’eau, incendies ou diminution du couvert, ainsi que la dispersion des jeunes, peuvent influencer la visibilité dans certains secteurs. Moins de vocalisations hors reproduction réduit aussi la détection ; moins de mentions ne signifie pas automatiquement que tous les oiseaux ont migré. On ne trace donc pas de trajet mensuel ou de suite de pays non vérifiés ; la possibilité de déplacements locaux reste séparée des preuves réelles de suivi.
Habitat de reproduction
Les marais à roseaux, cannes et herbes aquatiques denses forment le milieu essentiel. Des eaux saisonnières favorables peuvent être utilisées avec les zones humides permanentes. Le couvert dense des rivières, lacs, mares et barrages procure abri et support du nid, absents de la seule eau profonde dégagée. Vase, eaux peu profondes et plantes flottantes peuvent servir à l’alimentation. Il faut évaluer la continuité du couvert de rive, pas seulement l’eau.
Site du nid
Le nid est une coupe peu profonde de feuilles, roseaux et herbes. Il est placé dans les plantes, à environ 40 cm au-dessus de l’eau dans certains exemples spécialisés. La description régionale donne 2–6 œufs, environ 20 jours d’incubation par les deux partenaires et le premier vol à six–sept semaines (informations spécialisées d’Afrique australe pour le Râle bleuâtre). Sortie du nid, vol et alimentation indépendante sont des phases distinctes. Une hauteur citée n’est pas supposée fixe pour tous les nids.
Utilisation quotidienne de l’espace
Il circule sur les surfaces vaseuses et peu profondes près d’un couvert dense ; il peut aussi être signalé dans les rizières ou les cannes à sucre saisonnièrement mouillées près des marais. Cela ne signifie pas qu’un champ sec soit le même habitat qu’une roselière. L’usage survient lorsque eau et structure végétale conviennent ensemble. Le sondage du bec d’un oiseau caché peut être visible ; si l’aliment n’est pas bien vu, seul le comportement est noté.
Feu, assèchement et coupe du couvert dense peuvent modifier l’adéquation temporaire d’un même petit lieu. Ne plus y entendre l’oiseau lors d’une visite ne prouve pas son départ. Écarter les roseaux abîme le couvert et modifie le comportement. Attendre en silence et répéter à des heures et dates différentes aide à distinguer présence et facilité de détection.
Que mange-t-il ?
Insectes, vers et autres petits invertébrés forment une part importante des aliments. Les listes spécialisées régionales citent araignées et crustacés, petites grenouilles et poissons, ainsi que certaines graines. L’utilisation occasionnelle de charognes est aussi rapportée. Cette diversité ne signifie pas que chaque individu consomme tous ces groupes dans les mêmes proportions chaque jour. Disponibilité des proies, profondeur de l’eau et structure du couvert peuvent modifier leur accessibilité.
Une liste variée distingue proie directement vue et aliment rapporté en général par la source. Plonger la tête dans l’eau ne prouve pas la capture d’un poisson : l’oiseau peut y chercher d’autres petits organismes, comme dans la vase. Associer le long bec seulement à la pêche fait oublier la recherche d’invertébrés à couvert.
Comment cherche-t-il sa nourriture ?
Il peut sonder vase et eau peu profonde de son long bec, et cueillir de petites proies parmi les plantes ou autour du couvert flottant. Il plonge parfois la tête sous l’eau. Un bref mouvement du bec dans les plantes n’est pas nécessairement une capture réussie. Si prise et déglutition sont vues, elles sont notées séparément ; le temps de recherche seul ne remplace pas un nombre de proies capturées.
Il peut se nourrir brièvement à découvert et se cacher à nouveau. Les retours au même point peuvent montrer l’usage conjoint du couvert proche pour la sécurité et la recherche de proies ; ils ne donnent pas une superficie quotidienne précise. L’alimentation des jeunes aidés par les adultes se distingue de leur propre chasse. L’observateur doit regarder le mouvement naturel sans donner de nourriture pour prolonger la visibilité ni changer le couvert où l’oiseau se cache.
Le silence n’est pas l’absence
Les vocalisations facilitent la découverte de ce râle caché. Une moindre activité sonore hors reproduction peut contribuer à moins de données au même endroit. L’entendre peu un mois n’équivaut donc pas au départ de tous les oiseaux. L’interprétation des variations saisonnières de l’atlas considère ensemble probabilité de détection et déplacement réel ; aucun calendrier migratoire fixe n’est construit sans les séparer.
La valeur d’une petite pièce d’eau
Une petite pièce d’eau à végétation dense peut aussi servir. Sa faible surface ne la rend pas seule insignifiante : connexions, couvert voisin et continuité saisonnière de l’eau importent également. À l’inverse, une observation en eau artificielle n’est pas une preuve expérimentale de résistance à toutes les pertes de zones humides naturelles. La fonction de l’habitat exige une évaluation plus large qu’une brève apparition d’un oiseau.
Le poussin qui marche et le jeune qui vole
La mobilité après l’éclosion ne signifie pas que le développement soit terminé. Sortie du nid et premier vol sont des phases différentes ; l’aide alimentaire de l’adulte est suivie séparément. Comparer des jeunes d’une famille à différents jours ne permet pas un âge exact en l’absence de date de départ connue. Marcher au sol ne donne pas au jeune oiseau aquatique les mêmes capacités alimentaires qu’à l’adulte.
Le sens des données régionales de reproduction
L’atlas d’Afrique australe donne des périodes différentes pour le Zimbabwe, l’ancien Transvaal et le KwaZulu-Natal. Elles ne sont pas ramenées à un calendrier continental unique ; les mentions peuvent d’ailleurs couvrir plusieurs stades, de la ponte aux soins des poussins. Certaines régions ont peu de données. Au lieu de traiter un mois vide comme une reproduction impossible, il faut nommer les exemples régionaux vérifiés. Le calendrier conserve ainsi la portée réelle des observations sans inventer l’inconnu.