Oiseaux du monde Statut UICNLC · Préoccupation mineureCatégorie mondiale de l'UICN. BirdLife v10 (2025) ; correspondance taxonomique : AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L'année de la liste n'est pas la date d'évaluation de l'espèce. Source et méthode · BirdLife OrdreAccipitriformesAigles, éperviers et apparentés FamilleAccipitridaeAccipitridae
Gymnogène d’Afrique
Polyboroides typus
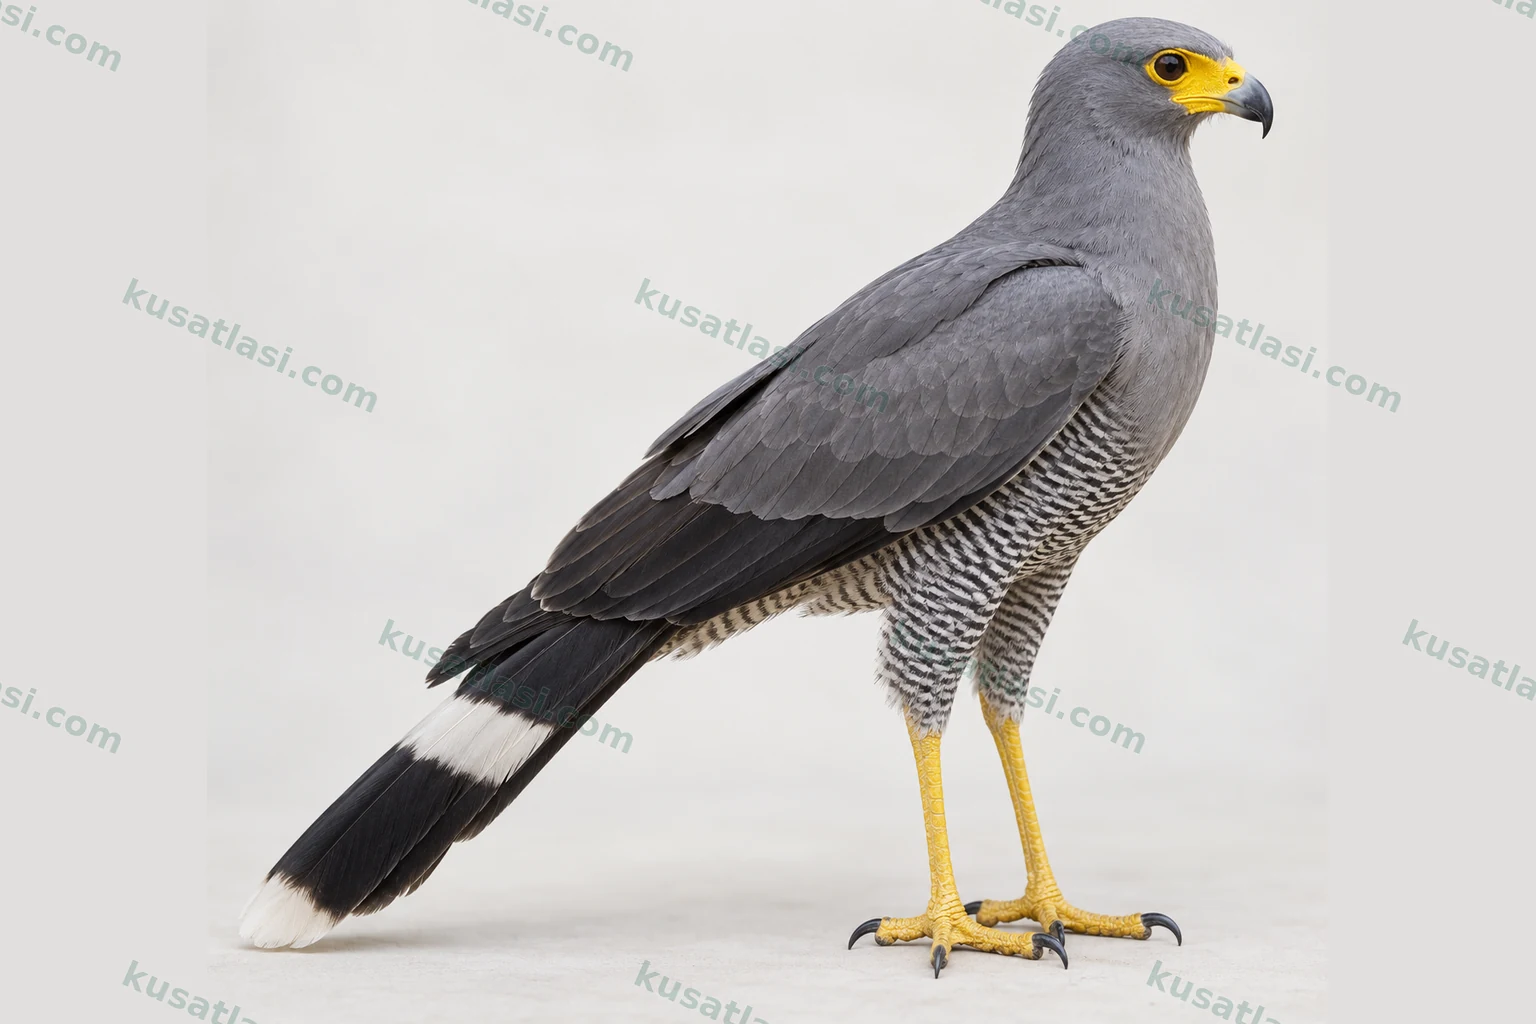
Ce rapace à larges ailes explore les cavités des arbres pour chasser. On le reconnaît au corps gris, au ventre finement barré, à la queue noire à bande blanche et à la face nue.
Biométrie
Longueur
Mâle65 cm
Femelle65 cm
Valeur commune à l’espèce
Envergure
Mâle118–152 cm
Femelle118–152 cm
Valeur commune à l’espèce
Poids
Mâle500–710 g
Femelle580–820 g
Gymnogène d’Afrique
Milieux boisés favorables d’Afrique subsaharienneGuide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreElle est généralement jaune et peut devenir rose ou rouge pendant le comportement.
Elle s’évalue avec le corps gris et les fines barres ventrales de l’adulte.
Il peut ouvrir les ailes pour l’équilibre en fouillant des trous étroits.
Comparer mâle et femelle
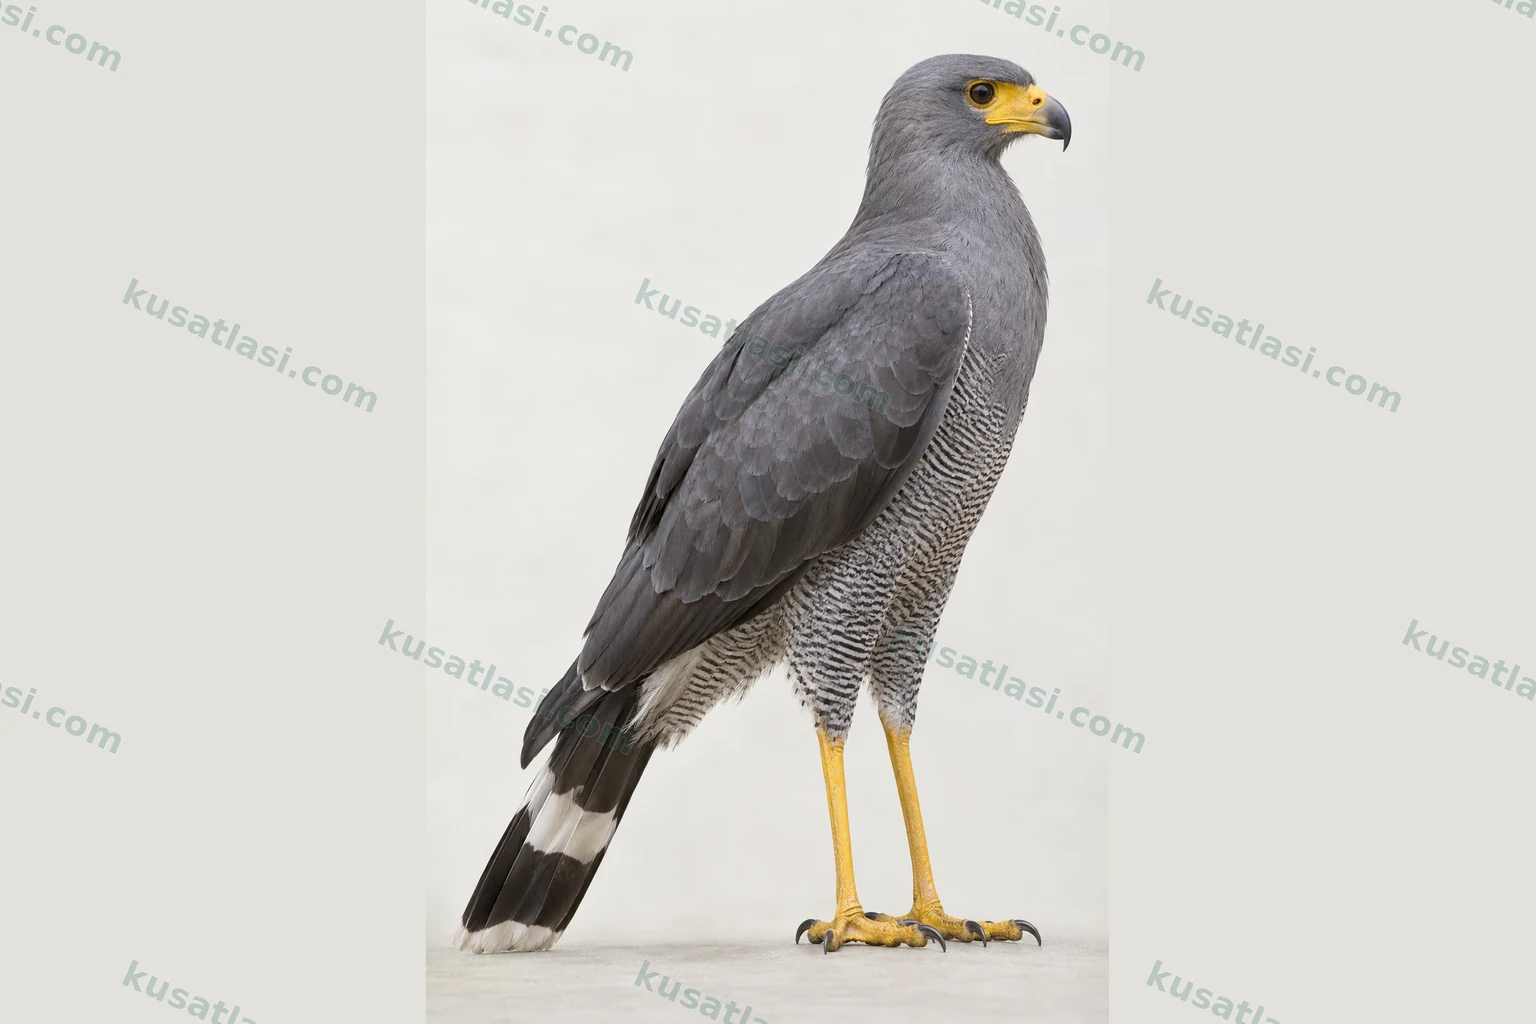 FemelleMâle
Les couleurs fondamentales adultes sont semblables ; la femelle est généralement plus grande. La rougeur faciale ne donne pas le sexe. Le jeune brun et tacheté n’est pas soumis à la clé du gris adulte.
Où le chercher dans son aire naturelle ?
Depuis un chemin ou poste existant, regardez perchoirs arborés, lisières et bandes boisées des ruisseaux ; n’approchez pas nids ou colonies.
Le calendrier donne un exemple régional austral de ponte : août–décembre, avec maximum de septembre à novembre. La même saison n’est pas supposée ailleurs en Afrique.
Janvier
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois est hors de la principale période de ponte indiquée ; cela ne signifie ni absence locale ni absence de reproduction.
Février
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois est hors de la principale période de ponte indiquée ; cela ne signifie ni absence locale ni absence de reproduction.
Mars
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois est hors de la principale période de ponte indiquée ; cela ne signifie ni absence locale ni absence de reproduction.
Avril
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois est hors de la principale période de ponte indiquée ; cela ne signifie ni absence locale ni absence de reproduction.
Mai
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois est hors de la principale période de ponte indiquée ; cela ne signifie ni absence locale ni absence de reproduction.
Juin
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois est hors de la principale période de ponte indiquée ; cela ne signifie ni absence locale ni absence de reproduction.
Juillet
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois est hors de la principale période de ponte indiquée ; cela ne signifie ni absence locale ni absence de reproduction.
Août
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois est dans la période de ponte.
Septembre
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois fait partie du maximum de ponte signalé.
Octobre
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois fait partie du maximum de ponte signalé.
Novembre
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois fait partie du maximum de ponte signalé.
Décembre
L’espèce est principalement sédentaire. Dans l’exemple reproducteur régional sud-africain, ce mois est dans la période de ponte.
Nid, œuf et incubation
Le nid est une plateforme de branches garnie de feuilles vertes, dans un arbre ou un site rocheux adapté. La fiche australe donne 1–3 œufs, 35–36 jours d’incubation, départ du nid à 45–55 jours et au moins dix jours supplémentaires de soutien parental partiel. Les deux œufs, environ 36 jours d’incubation et 52 de développement de Peregrine Fund viennent d’un autre contexte. Des attaques mortelles entre jeunes d’une même fratrie sont rapportées, sans être inévitables dans chaque nid.
Il reste souvent silencieux. Des sifflements fins, prolongés et plaintifs sont rapportés dans les interactions reproductrices, avec des appels répétés plus courts près du nid ; un cri isolé ne détermine pas le sexe.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
Le Gymnogène d’Afrique Polyboroides typus est un rapace diurne à larges ailes, longues pattes et petite tête. Chez l’adulte, on cherche ensemble tête et poitrine grises, ventre finement rayé noir et blanc, large bande blanche traversant la queue noire et peau nue jaune autour de l’œil. Une face devenant rose ou rouge pendant un moment n’indique pas une autre espèce : elle peut changer avec le comportement. Un corps gris ou point jaune lointain ne suffit pas ; bande caudale, proportion de tête et forme alaire doivent aussi être vues.
Il est instructif de le voir explorer troncs et cavités. Il peut ouvrir les ailes pour s’équilibrer entre branches, tourner le corps sous des angles inhabituels et étendre une patte dans un passage étroit. Ce n’est pas nécessairement un malaise, mais un élément de la recherche alimentaire. Tout rapace grimpant n’est pas pour autant cette espèce. Le comportement prend valeur lorsqu’il correspond à l’anatomie visible. Tête fine et pattes proportionnellement longues aident sans vue nette de la face.
Aspect général et posture
Le dessus adulte est généralement gris, avec des taches sombres sur les couvertures alaires. Sous la poitrine grise, ventre et parties supérieures emplumées des pattes sont plus finement barrés. La large bande blanche de la queue ouverte contraste avec le noir. L’œil est brun sombre et les pattes nues jaunes. La zone jaune ou rougie entourant l’œil sombre est de la peau sans plumes, pas l’œil lui-même. Bec crochu et tête petite relativement au corps changent l’impression d’un autour gris ordinaire.
L’étude de champ visuel de 2023 a montré que la vision commune aux deux yeux s’étend au-dessus de la tête. Les chercheurs relient cela à la possibilité de voir pattes et ouverture en position inversée. Le champ mesuré est un résultat scientifique ; son intérêt alimentaire est une interprétation fonctionnelle. On n’explique pas chaque geste par cette seule propriété ni ne classe l’espèce comme la plus perçante de tous les rapaces. Forme de tête et position des yeux peuvent répondre à un problème de chasse particulier.
Mâles, femelles et jeunes
Les adultes des deux sexes ont le même arrangement fondamental des couleurs. La femelle est généralement plus grande, mais une impression de taille ne suffit pas pour un individu solitaire, éloigné ou sans échelle. Nombre de taches alaires, poitrine obscurcie à l’ombre ou rougeur faciale ne sont pas non plus des critères sexuels isolés fiables.
Les jeunes n’ont pas le gris net adulte. Le dessus est brun ; le dessous peut être diversement clair et tacheté ou strié, et plusieurs bandes sombres traversent ailes et queue. La peau faciale peut sembler jaune verdâtre. Un jeune brun n’est pas transformé en autre espèce parce qu’il diffère du dessin gris. Face, aile, queue entière et proportions des pattes s’évaluent ensemble. Aucun brun ne correspond automatiquement à un mois ou un âge précis : des plumages intermédiaires existent.
Aspect en vol
Larges ailes aux extrémités digitées et longue queue dessinent un contour net. En plané, pointes et bords postérieurs sombres peuvent contraster avec le corps clair. La large bande caudale blanche aide à ciel découvert, moins avec queue fermée ou contre-jour. Battements, plané et recherche basse ne donnent pas la même image. Attendre un changement de posture vaut mieux que forcer une lecture d’un seul cliché flou.
La taille seule ne décide pas : deux oiseaux paraissant à même hauteur peuvent être à différentes distances, et une flexion temporaire change les proportions. Petite tête, largeur alaire, bande caudale et barres du dessous sont notées seulement si elles sont vues. Une bande invisible n’est pas ajoutée par retouche comme si elle existait. Le bref passage d’un chasseur entre branches n’est pas une preuve de migration lointaine.
Voix et comportement
Il peut rester silencieux lors de nombreuses rencontres. Un sifflement fin, prolongé et plaintif est signalé pendant les interactions reproductrices, avec des sons répétés plus courts près du nid. Une imitation écrite en turc ne traduit pas exactement hauteur, durée ou distance. Le son est relié à l’individu visible dans cette direction ; une voix d’origine incertaine ne donne ni sexe ni reproduction.
La face peut rougir rapidement lors de rencontres entre partenaires ou de relèves au nid. Cela diffère d’une couleur permanente des plumes. Les deux peuvent préparer le nid ; le partage de l’incubation n’impose pas le même partage des apports après l’éclosion. On ne suppose pas que chaque apporteur de proie entre au nid, ni qu’une visite représente tout le soin parental. Temps, comportements et individus sont notés séparément pendant une longue observation.
Espèces ressemblantes
1. Melierax metabates peut sembler gris et long sur pattes de loin. On compare ses pattes et base du bec rose orangé, sa disposition alaire et le tour de tête. Chez Polyboroides typus, grande peau nue de la petite tête, large bande blanche de la queue noire et dessous finement barré s’évaluent ensemble. Une nuance grise ne tranche pas.
2. Aerospiza tachiro peut être gris ou brun selon âge, sexe et région. Aspect à œil jaune, gorge blanche et dessous variable roux ou brun aident. On vérifie la grande zone nue autour de l’œil sombre et les différentes proportions de tête, ailes et queue de Polyboroides typus. Imposer une clé adulte aux jeunes bruns est particulièrement trompeur.
Répartition mondiale
Polyboroides typus est naturellement subsaharien. De l’Ouest et du Centre, son aire gagne l’Est puis l’Afrique du Sud par les secteurs boisés favorables, sans occuper toute la surface de chaque pays. Déserts ouverts et milieux très secs sans arbres ne valent pas des lisières fournissant chasse et nidification. La fiche sud-africaine cite notamment Zimbabwe, Mozambique, nord et est du Botswana, nord de la Namibie et est et sud de l’Afrique du Sud.
Deux sous-espèces sont reconnues actuellement, sans redessiner leurs limites sur un cliché plus sombre. Polyboroides radiatus de Madagascar est distinct ; mesures et reproduction de l’espèce continentale ne vont pas automatiquement sur l’île. Un nom de genre commun seul peut faire perdre la distinction. La carte sépare modèle d’aire et observations à identité vérifiée. Un modèle colorié n’est ni frontière certaine de reproduction, ni présence actuelle de tout l’effectif, ni absence réelle de chaque blanc.
Situation en Turquie
Cette vérification n’a pas trouvé d’aire naturelle régulière ni de population nicheuse turque. Un nom turc sur le site ne prouve pas l’inscription à la liste nationale. Tout signalement supposé turc exige vérification de l’espèce et de l’origine avant ajout à l’aire naturelle. Une donnée africaine datée ne devient pas non plus départ d’une migration vers la Turquie.
Déplacements migratoires
L’espèce est surtout sédentaire ; des déplacements locaux peuvent se produire dans les secteurs secs. Des hausses mensuelles de rencontres dans l’ouest de la région sud-africaine ont été interprétées comme indice possible, pas comme route ouest–est confirmée par émetteur. Aucun trait vers la Turquie, flèche entre pays ou distance totale n’est inventé. Changer d’arbres pour chasser et migrer saisonnièrement sont distincts. Le calendrier représente l’exemple explicite de ponte sud-africaine, pas une migration continentale.
Milieu de reproduction
Savanes arborées, lisières, bandes d’arbres riverains, falaises boisées et grands arbres de jardins peuvent servir. Des présences en milieux modifiés et plantations ne rendent pas la perte d’arbres naturels négligeable. Cavités à explorer, perchoirs protégés et structures de nidification comptent ensemble. Un terrain sec totalement déboisé est noté séparément du ruisseau arboré voisin.
Emplacement du nid
La plateforme de branches du couple est garnie de feuilles vertes. Elle peut être dans un arbre ou un site rocheux favorable ; des nids anciens d’autres rapaces sont aussi signalés. La fiche sud-africaine donne 1–3 œufs, 35–36 jours d’incubation assurée principalement par la femelle et un départ du nid à 45–55 jours. Le résumé de deux couples suivis en 1978 donne aussi 35–36 jours et participation des deux sexes à l’incubation. Peregrine Fund décrit deux œufs, environ 36 jours d’incubation et 52 de développement. Ces contextes ne sont pas réunis en moyenne nouvelle.
Départ et alimentation entièrement autonome ne coïncident pas forcément. La fiche régionale indique encore au moins dix jours possibles de soutien parental partiel. Des attaques mortelles entre jeunes d’une même fratrie existent, sans que deux jeunes au nid rendent l’issue inévitable ni prouvent la faim comme cause unique. On ne grimpe pas, n’ouvre pas les branches ni ne joue de cris pour voir. Un suivi rapproché répétitif perturbant les soins est évité.
Utilisation quotidienne de l’espace
Il peut surveiller depuis un perchoir caché puis explorer tronc ou colonie d’oiseaux. Ailes d’équilibre et patte dans un trou diffèrent d’une poursuite rapide de terrain ouvert. Une présence au jardin ne limite pas tout l’habitat à ce lieu. Arbre de chasse, végétation et directions peuvent être notés sans calculer superficie ou résidence permanente d’un cas.
Que mange-t-il ?
Œufs et jeunes de petits oiseaux, petits mammifères, reptiles, grenouilles et insectes sont consommés. Poissons, charogne et fruits du palmier à huile sont parfois rapportés. Tous les individus ne les mangent pas également. Une visite de colonie remarquable peut être plus facilement notée ; la proie la plus vue ne devient pas l’aliment annuel principal. Capture vivante et ramassage d’un animal mort sont distincts.
Le résumé reproducteur de 1978 cite, sur 85 proies identifiées, oiseaux, reptiles et amphibiens, petits mammifères et insectes. Il n’étaye pas une alimentation exclusive de poussins. Comme il concerne des couples et une période de reproduction précis, les proportions ne vont ni à toute l’Afrique, ni à tous les mois, ni hors des soins aux jeunes. Aucun pourcentage continental n’est produit.
Comment chasse-t-il ?
Il peut fouiller tronc, branche, fissure rocheuse ou nid de tisserin avec bec et pattes. Il pend parfois à l’envers en battant pour s’équilibrer. Extraire une proie cachée pose un problème visuel et mécanique différent d’une poursuite. Une cheville très mobile facilite l’accès et la petite tête l’approche du regard. Tout individu près d’un nid n’est pas supposé prendre des œufs à ce moment.
En 2023, une zone de vision binoculaire a été mesurée au-dessus de la tête. Les chercheurs proposent que garder les pattes dans cette zone en posture inhabituelle puisse aider à les diriger vers l’ouverture. Mesure oculaire et interprétation fonctionnelle sont séparées. Ailes et queue se notent seulement si visibles ; sans voir le trou, on ne devine pas la proie.
Mobilité de la cheville
L’expression double genou est mémorable mais ne signifie pas un second genou. Le résumé anatomique de 1978 décrit une cheville mobile vers l’avant, l’arrière et les côtés, et étudie le lien avec sa structure. Atteindre un trou ne tient pas qu’à de longues pattes : la direction articulaire importe. Nul besoin de forcer la patte ou modifier l’entrée pour le constater ; on observe naturellement de loin.
Voir ensemble au-dessus de la tête
Portugal et ses collègues ont comparé en 2023 le champ visuel à celui de 18 autres espèces d’accipitridés. Son extension au-dessus de la tête compte davantage qu’une largeur maximale extraordinaire de la vision commune. Mesures sur oiseaux sous soins et données comparatives déjà publiées ne sont pas un examen de chaque individu sauvage. Voir les pieds en posture inversée interprète le résultat sans hiérarchiser tous les rapaces.
Une face rapidement changeante
La peau passant de jaune à rose ou rouge explique des photos différentes du même oiseau. Cela a été signalé dans les rencontres de partenaires près du nid. Une face rouge n’est ni couleur sous-spécifique permanente ni preuve de femelle. Si avant et après sont vus, le comportement est noté. Sans supposer le même changement partout, queue et corps soutiennent l’identification.
Chasses semblables, espèces distinctes
Geranospiza caerulescens d’Amérique a aussi des pattes mobiles pour extraire les proies. L’ancienne étude anatomique conclut que cette seule ressemblance ne prouve pas une parenté proche entre genres. Polyboroides radiatus de Madagascar est une autre espèce du même genre. Mouvement semblable, genre commun et espèce sont trois niveaux. Sans vérifier le nom, on ne transfère pas mesures, durée reproductive ou aire d’un autre rapace.