Oiseaux du monde Statut UICNLC · Préoccupation mineureCatégorie mondiale de l'UICN. BirdLife v10 (2025) ; correspondance taxonomique : AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L'année de la liste n'est pas la date d'évaluation de l'espèce. Source et méthode · BirdLife OrdreFalconiformesFaucons et caracaras FamilleFalconidaeFalconidae
Fauconnet d’Afrique
Polihierax semitorquatus
Petit rapace diurne compact des savanes sèches. Face et dessous blancs, croupion blanc et dos gris du mâle adulte ou châtain de la femelle s’examinent ensemble.
Biométrie
Longueur
Mâle20 cm
Femelle20 cm
Valeur commune à l’espèce
Envergure
Mâle34–40 cm
Femelle34–40 cm
Valeur commune à l’espèce
Poids
Mâle56 g
Femelle59,3 g
Fauconnet d’Afrique
Régions séparées de savane sèche de l’est et du sud-ouest africainsGuide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreUtile chez l’adulte ; pas de sexe forcé de face ou chez le jeune.
Net en vol rapide légèrement onduleux.
Face, dos et proportions le séparent des pies-grièches perchées à découvert.
Comparer mâle et femelle
 FemelleMâle
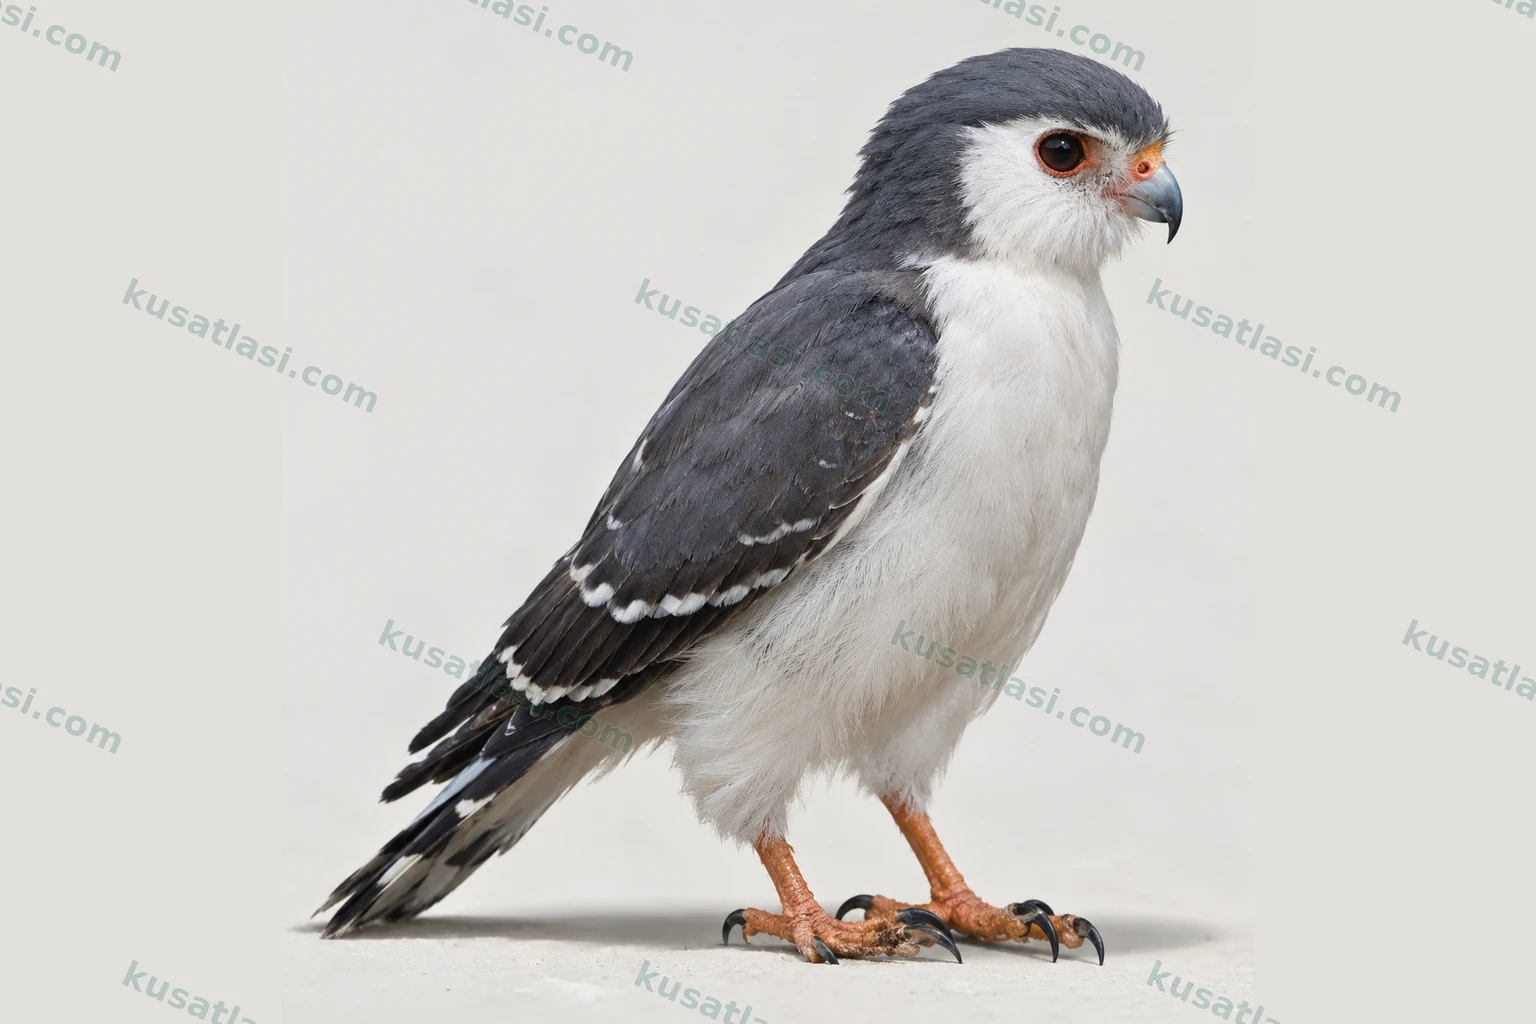
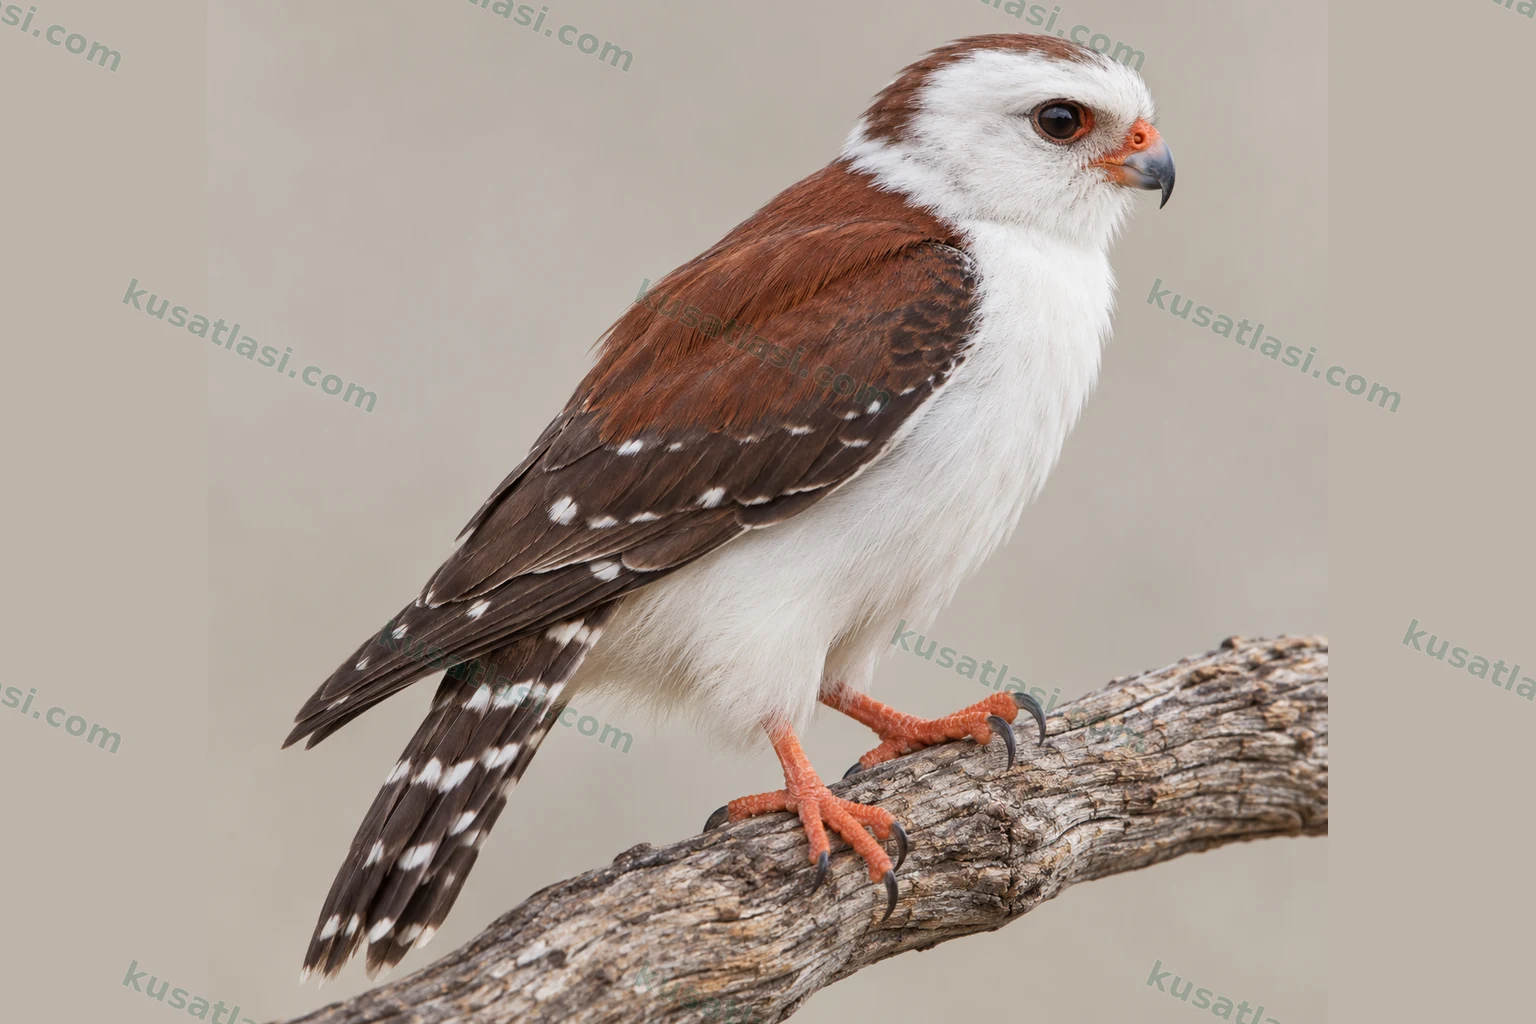
Le mâle adulte a le dos gris et la femelle le dos châtain. Tous deux ont les parties inférieures blanches. Les tons chauds de la poitrine et les variations des parties supérieures juvéniles ne doivent pas être forcés dans la clé sexuelle adulte.
Où le chercher dans son aire naturelle ?
Des chemins existants, surveillez perchoirs dégagés et abords des colonies de tisserins. N’approchez pas les entrées et ne faites pas sortir un oiseau dormant.
Le calendrier est un exemple régional tiré de dix saisons de reproduction à Tswalu Kalahari : les pontes ont été relevées en août–février, avec des débuts concentrés en septembre–décembre. Ces dates ne sont étendues ni à l’Afrique orientale ni à toute la population.
Janvier
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : dans la période enregistrée août–février. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Février
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : dans la période enregistrée août–février. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Mars
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : hors de l’intervalle de ponte de cette étude ; cela ne signifie ni absence locale ni absence de reproduction. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Avril
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : hors de l’intervalle de ponte de cette étude ; cela ne signifie ni absence locale ni absence de reproduction. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Mai
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : hors de l’intervalle de ponte de cette étude ; cela ne signifie ni absence locale ni absence de reproduction. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Juin
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : hors de l’intervalle de ponte de cette étude ; cela ne signifie ni absence locale ni absence de reproduction. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Juillet
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : hors de l’intervalle de ponte de cette étude ; cela ne signifie ni absence locale ni absence de reproduction. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Août
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : dans la période enregistrée août–février. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Septembre
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : mois de débuts reproducteurs concentrés signalés. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Octobre
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : mois de débuts reproducteurs concentrés signalés. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Novembre
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : mois de débuts reproducteurs concentrés signalés. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Décembre
Essentiellement sédentaire. Exemple régional de ponte de l’étude de Tswalu Kalahari : mois de débuts reproducteurs concentrés signalés. Ces mois ne définissent pas un calendrier commun à l’Afrique orientale.
Nid, œuf et incubation
Au sud, il niche généralement dans une chambre d’une colonie de Philetairus socius et, à l’est, dans les nids d’autres tisserins. La nouvelle étude du Kalahari a relevé un à trois œufs, le plus souvent trois ; la durée moyenne d’incubation était de 33 jours (57 périodes, écart-type de 4 jours) et le séjour moyen des jeunes au nid de 37 jours (51 périodes, écart-type de 5 jours). Les données anciennes d’un à quatre œufs, de 27–31 jours d’incubation et de 27–40 jours au nid gardent leur propre contexte. Les jeunes peuvent revenir dans la chambre du nid après l’avoir quittée. N’introduisez pas d’outils dans les entrées et ne modifiez ni le couvert ni la structure.
De rapides séries d’appels fins et rauques peuvent être entendues lors de la reproduction et de l’alarme. Une visite silencieuse ne prouve pas l’absence ; vérifiez la provenance du son avec l’individu observé.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
Le Fauconnet d’Afrique, Polihierax semitorquatus, est un petit rapace diurne au dessous blanc et à tête grise. Sur une branche dégagée il évoque d’abord une petite pie-grièche, mais son corps est plus compact, sa tête plus ronde et son bec de rapace net. L’adulte mâle a le dos gris, la femelle châtain. Ce signe aide à sexer les adultes ; une vue de face et de poitrine seule ne permet pas de prétendre avoir vu le dos.
Le croupion blanc frappe en vol rapide légèrement onduleux. Marques blanches des ailes et de la queue sombres s’ajoutent au corps blanc. La taille d’un petit oiseau blanc sur un arbre peut tromper, distance et échelle de l’arbre modifiant l’impression. Face claire, forme compacte, dos, croupion et vol combinés renforcent l’identification. On le cherche dans les savanes sèches orientales et australes, pas partout sur le continent.
Pygmy Falcon et African Pygmy Falcon nomment le même taxon africain. Des noms voisins ne l’unissent pas aux petits faucons asiatiques ou autres rapaces nains. Vérifier Polihierax semitorquatus importe surtout pour comparer genres et noms des vieux livres. Les oiseaux associés au nid diffèrent entre les deux populations principales : un détail austral ne vaut pas automatiquement partout.
Aspect général et posture
Face, poitrine et ventre adultes sont blancs. La tête est grise, comme le dos mâle. Le dos châtain femelle contraste avec tête grise et ailes sombres. Le croupion blanc aide chez les deux sexes. Rémiges sombres et marques blanches rompent le dessus, qui n’est pas uniformément gris. La zone claire de nuque peut être nette d’un angle, cachée par les plumes d’un autre : ne pas attendre un collier complet toujours découvert.
Les yeux sont brun foncé, avec cercle chaud orangé et zones orange rousses autour du bec. Le bec est sombre et les pattes orangées. On les voit en bonne lumière ; mal les distinguer dans l’ombre ou de loin ne prouve pas leur absence. Séparer l’ombre du menton et du bec d’une vraie marque de plume. Face et proportions combinées sont plus sûres pour comparer une pie-grièche noire et blanche.
Il peut utiliser branche dégagée, sommet d’arbre ou autre poste haut. Surveiller le sol et descendre brièvement sur une proie est typique d’un petit rapace, mais aussi des pies-grièches : ce n’est pas suffisant. Le retrait à l’ombre aux heures chaudes explique parfois une présence moins visible au même perchoir. Ne pas chercher à le déplacer sur une branche plus commode.
Mâles, femelles et jeunes
Le dos adulte permet un sexage utile : gris mâle, châtain femelle. Tête grise et dessous blanc sont partagés. De face, les adultes se ressemblent beaucoup ; blancheur ou taille apparente ne choisissent pas le sexe. La comparaison des planches doit viser le dos, principale différence. Le brun de la femelle ne couvre pas tout son corps.
Les jeunes peuvent avoir un voile crème chaud ou roussâtre à la poitrine, moins blanc pur. Leurs parties supérieures grises et brunes ne suivent pas toujours la clé sexuelle adulte. Un jeune n’est donc pas une femelle adulte d’après le seul dos. Développement du plumage, tons d’âge et aspect réellement adulte doivent être vérifiés. La proximité d’un parent renseigne le contexte sans fixer un stade exact.
Les jeunes déjà envolés peuvent revenir aux chambres de la colonie. Trouver un nid vide lors d’une visite n’établit donc pas le jour précis du premier vol. Voler ne signifie pas être aussitôt autonome pour la nourriture. Observer de loin les parents apportant des proies ; déplacer ou approcher un jeune perturbe sans fournir d’âge fiable.
Dans certains groupes, d’autres oiseaux aident le couple. Une étude de six saisons a trouvé des aides dans 19 % des nids, surtout des jeunes de l’année précédente restés sur place. Ce résultat appartient à la population étudiée, pas à toute l’Afrique. Trois ou quatre adultes dans une colonie ne prouvent pas qu’ils soient tous parents.
Aspect en vol
Le vol rapide et légèrement onduleux alterne parfois battements et brèves glissades. Le croupion blanc ressort devant ailes et queue sombres dans un virage ou un départ oblique. Le dessus révèle parfois le dos gris mâle ou châtain femelle, sous angle et lumière adéquats. Une ombre sur un oiseau rapide n’est pas une plume châtain.
De dessous, le corps blanc contraste avec les ailes plus sombres et les marques transversales blanches de la queue. Les deux faces de l’aile diffèrent ; le corps blanc seul ne renseigne pas sur le dos sexuel. Croupion et bas du corps sont anatomiquement distincts. Leur emplacement se note ou se dessine sans faire redécoller l’oiseau.
Face à un rapace gris et blanc plus grand en terrain ouvert, considérer aussi forme alaire, proportions et comportement de vol. Sans échelle à distance, la petitesse est incertaine. Retour au perchoir, dos exposé ou face vue complètent le vol. Porter le nom de faucon n’impose pas le profil de toutes les espèces de Falco.
Voix et comportement
Des séries rapides de cris fins et rudes sont possibles, surtout dans les alarmes et communications reproductrices. Le silence ailleurs dans l’année ne prouve pas l’absence d’une colonie adéquate. Associer l’arbre source à l’oiseau visible : d’autres espèces alarment aussi. La description écrite traduit un rythme, sans identification certaine à elle seule.
Couples et petits groupes familiaux se perchent à découvert. En Afrique australe, les chambres des nids collectifs de tisserins servent au repos nocturne et à la reproduction. Des fientes blanches aux entrées aident à trouver une chambre utilisée, sans prouver œufs ou jeunes. Observer les passages de l’extérieur plutôt que se placer dessous pour regarder dedans.
Espèces ressemblantes
1. La Pie-grièche fiscale, Lanius collaris, peut donner de loin une impression voisine par son noir et blanc, ses postes dégagés et ses courtes descentes vers des proies au sol. Comparer dessus et face noirs à la tête gris clair et au dos gris mâle ou châtain femelle du fauconnet. Il faut aussi voir silhouette compacte et croupion blanc. La chasse semblable n’indique pas une même famille.
2. L’Élanion blanc, Elanus caeruleus, se compare de loin par dessus gris et corps blanc. Épaules noires nettes, proportions alaires et vol incluant le surplace aident. Chez le fauconnet, associer croupion blanc, petit corps compact et vol rapide un peu onduleux. Sans échelle sûre, la petitesse apparente ne tranche pas.
Répartition mondiale
Deux grandes zones africaines sont disjointes. Au sud : régions sèches du sud de l’Angola, Namibie, sud-ouest du Botswana et nord-ouest sud-africain. À l’est : du Soudan du Sud et de l’Éthiopie aux secteurs adaptés de Somalie, Kenya et Tanzanie. Un vaste intervalle les sépare ; l’Afrique centrale ne doit pas être coloriée comme aire continue. Comparer les listes nationales plus larges des anciens comptes aux résumés taxonomiques récents exige plus qu’un nom voisin.
Situation dans l’aire naturelle
Les formes australe semitorquatus et orientale castanonotus décrivent la structure géographique. La nidification australe dépend particulièrement des colonies de Philetairus socius ; à l’est sont utilisés des nids de tisserins comme Dinemellia dinemelli. Une savane ouverte adéquate ne garantit pas des chambres appropriées. Sol de chasse et structures de nidification et de repos doivent se considérer ensemble.
Une longue étude à Tswalu Kalahari a montré des changements interannuels des territoires occupés et des décisions reproductrices. Tous les sites apparemment adaptés ne produisent pas chaque année. Ce sont des dynamiques locales, pas une estimation d’abondance au Kenya ou en Éthiopie. Un amas de points ne place pas non plus des fauconnets dans chaque colonie voisine. Effort et accessibilité influencent les relevés.
Migration
Il est généralement sédentaire. Le compte spécialisé austral évoque des déplacements hivernaux locaux possibles, pas un axe migratoire lointain régulier. Une famille passant entre colonies n’effectue pas nécessairement une liaison saisonnière entre les deux populations. Sans trajet confirmé, ni flèche continentale ni kilomètres supposés.
Les mois reproducteurs présentés sont un exemple régional du Kalahari austral. Pluies et partenaires de nid diffèrent à l’est : les mois du printemps austral ne valent pas pour tous. Même un sédentaire peut changer ressources locales, colonies et dispersion juvénile ; ces détails exigent des individus suivis au même lieu.
Milieu de reproduction
Savanes sèches ouvertes, prairies peu boisées, broussailles épineuses et semi-déserts sont les principaux milieux. Une vigie élevée et du sol ouvert avec proies visibles facilitent la chasse. Au sud, les grands nids collectifs de tisserins reposent parfois sur arbres ou supports humains adaptés. L’espèce d’arbre seule ne suffit pas : structure et chambres utilisables comptent.
Emplacement du nid
Il utilise surtout une chambre bâtie par d’autres oiseaux. Les grandes constructions australes de Philetairus socius réunissent de nombreuses chambres séparées ; le fauconnet entre dans la sienne. À l’est, d’autres tisserins interviennent. Ne pas confirmer l’usage en regardant dedans ou en élargissant l’entrée. Une colonie peut abriter plusieurs espèces et états reproducteurs.
L’étude de dix saisons à Tswalu Kalahari a relevé un–trois œufs, surtout trois. Les anciennes descriptions donnent un–quatre, d’un autre échantillon. La nouvelle étude mesure 33 jours d’incubation moyenne (57 périodes, écart-type 4 jours) et 37 jours de séjour moyen au nid (51 périodes, écart-type 5 jours). Ce ne sont ni durées exactes individuelles ni moyennes calculées ici. Les anciennes fourchettes de 27–31 jours d’incubation et 27–40 au nid gardent leur contexte distinct.
Les fientes d’occupation ne prouvent ni nombre d’œufs ni début de couvaison. Les chercheurs eux-mêmes ont signalé de possibles dérangements lors des contrôles. Ne pas entrer, introduire d’outil ou faire sortir un oiseau dormant. Préserver le nid prime sur photographier son contenu de près.
Utilisation quotidienne de l’espace
Il surveille depuis un poste dégagé, descend parfois au sol et regagne une hauteur. Colonie de repos et terrain de chasse se complètent. Un groupe utilisant plusieurs colonies ne signifie pas une paire ou un territoire indépendant par entrée. Les bagues colorées limitent la confusion en recherche ; chaque mouvement d’un oiseau non bagué n’est pas un nouvel individu.
Que mange-t-il ?
Petits reptiles et insectes sont les proies principales ; lézards, insectes de type criquet et coléoptères sont signalés. Petits rongeurs et oiseaux sont parfois capturés. Son petit corps limite les proies sans le rendre exclusivement insectivore. Si la proie reste indéterminée, noter le grand groupe plutôt qu’ajouter un détail invisible.
Il peut prendre des jeunes des tisserins dont il partage le nid. Utiliser une chambre et prédater d’autres habitants de la colonie coexistent dans son comportement. Cela ne signifie ni attaque de tout tisserin ni régime exclusivement composé d’eux. Fréquence, saison et ressources locales demandent des mesures distinctes.
Comment chasse-t-il ?
Il surveille surtout le sol d’un perchoir haut puis atteint sa proie en glissant ou descendant vite et brièvement. Certaines proies peuvent être prises en vol. Les mouvements de tête montrent une vigie possible, sans prouver qu’une proie a été vue : repos et surveillance partagent un lieu.
Défense de colonie et capture diffèrent. L’attaque d’un serpent factice a été évaluée comme défense, non comme preuve qu’il était pris pour nourriture ou que tout serpent est chassé. Ni appât ni proie vivante ne sont proposés. Observer capture et transport de loin, sans provoquer l’abandon d’une proie destinée aux jeunes.
Le petit rapace de la colonie
La grande construction collective de Philetairus socius offre une chambre déjà bâtie au fauconnet austral. Plus qu’un arbre partagé, c’est la structure de repos et de reproduction construite par un autre oiseau. Les fientes blanches à l’entrée révèlent parfois la chambre utilisée. Les hypothèses sur leur fonction diffèrent des traces réellement observées ; elles ne donnent pas le nombre de jeunes.
Protection et prédation ensemble
Défendre son propre nid des serpents peut indirectement aider les tisserins voisins, dont il peut pourtant manger les jeunes. Le présenter comme protecteur inconditionnel serait trompeur. Expériences et observations ont relevé moins de rencontres avec des serpents en colonies occupées, mais pas d’amélioration marquée du succès des tisserins. Avantages et coûts dépendent de la saison et de la colonie. Dans une expérience, les reproducteurs répondaient plus aux serpents factices qu’à l’objet témoin.
Cette défense apparaissait en reproduction ; les répétitions hors reproduction n’ont pas déclenché la même attaque. Un comportement n’est donc pas une mission annuelle immuable. Partager la colonie n’implique pas un bénéfice réciproque égal à chaque stade de vie.
Variabilité révélée par une longue étude
Dix saisons du Kalahari montrent une variation annuelle de ponte et succès. Trois œufs étaient les plus fréquents, pas obligatoires chez chaque couple chaque année. Certains tentaient une fois, d’autres recommençaient. Pondre une fois, tenter deux fois et réussir deux nichées sont des résultats distincts.
La moyenne locale récente d’incubation et les anciennes fourchettes ne sont pas la même statistique. Une valeur nouvelle plus longue ne demande pas de mélanger et moyenner les anciennes. Intervalles de contrôle, œuf pris comme début et contexte régional comptent ; aucune cause unique n’est affirmée sans preuve.