Oiseaux du monde Statut UICNLC · Préoccupation mineureCatégorie mondiale de l'UICN. BirdLife v10 (2025) ; correspondance taxonomique : AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L'année de la liste n'est pas la date d'évaluation de l'espèce. Source et méthode · BirdLife OrdrePasseriformesPassereaux FamilleCalyptomenidaeCalyptomenidae
Eurylaime du Cap
Smithornis capensis
Petit oiseau forestier au bec large et plat, à queue courte et strié de brun et blanc. En parade, il peut dévoiler son dos blanc et produire un son mécanique par vibration des rémiges.
Biométrie
Longueur
Mâle12–14 cm
Femelle12–14 cm
Valeur commune à l’espèce
Longueur de l’aile
Mâle7,01 cm
Femelle7,01 cm
Valeur commune à l’espèce
Poids
Mâle21–26,9 g
Femelle17,4–27,5 g
Eurylaime du Cap
Répartition discontinue dans les forêts et boisements denses favorables d’Afrique subsaharienneGuide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreLa largeur du bec se voit mieux de face ou par-dessous ; vérifiez-la avec la queue courte.
La zone rousse marquée des eurylaimes semblables manque ; le centre du ventre peut être plus uni.
Les plumes dorsales cachées peuvent se découvrir en parade. N’attendez pas les mêmes son et aspect à chaque vol ordinaire.
Comparer mâle et femelle
 FemelleMâle
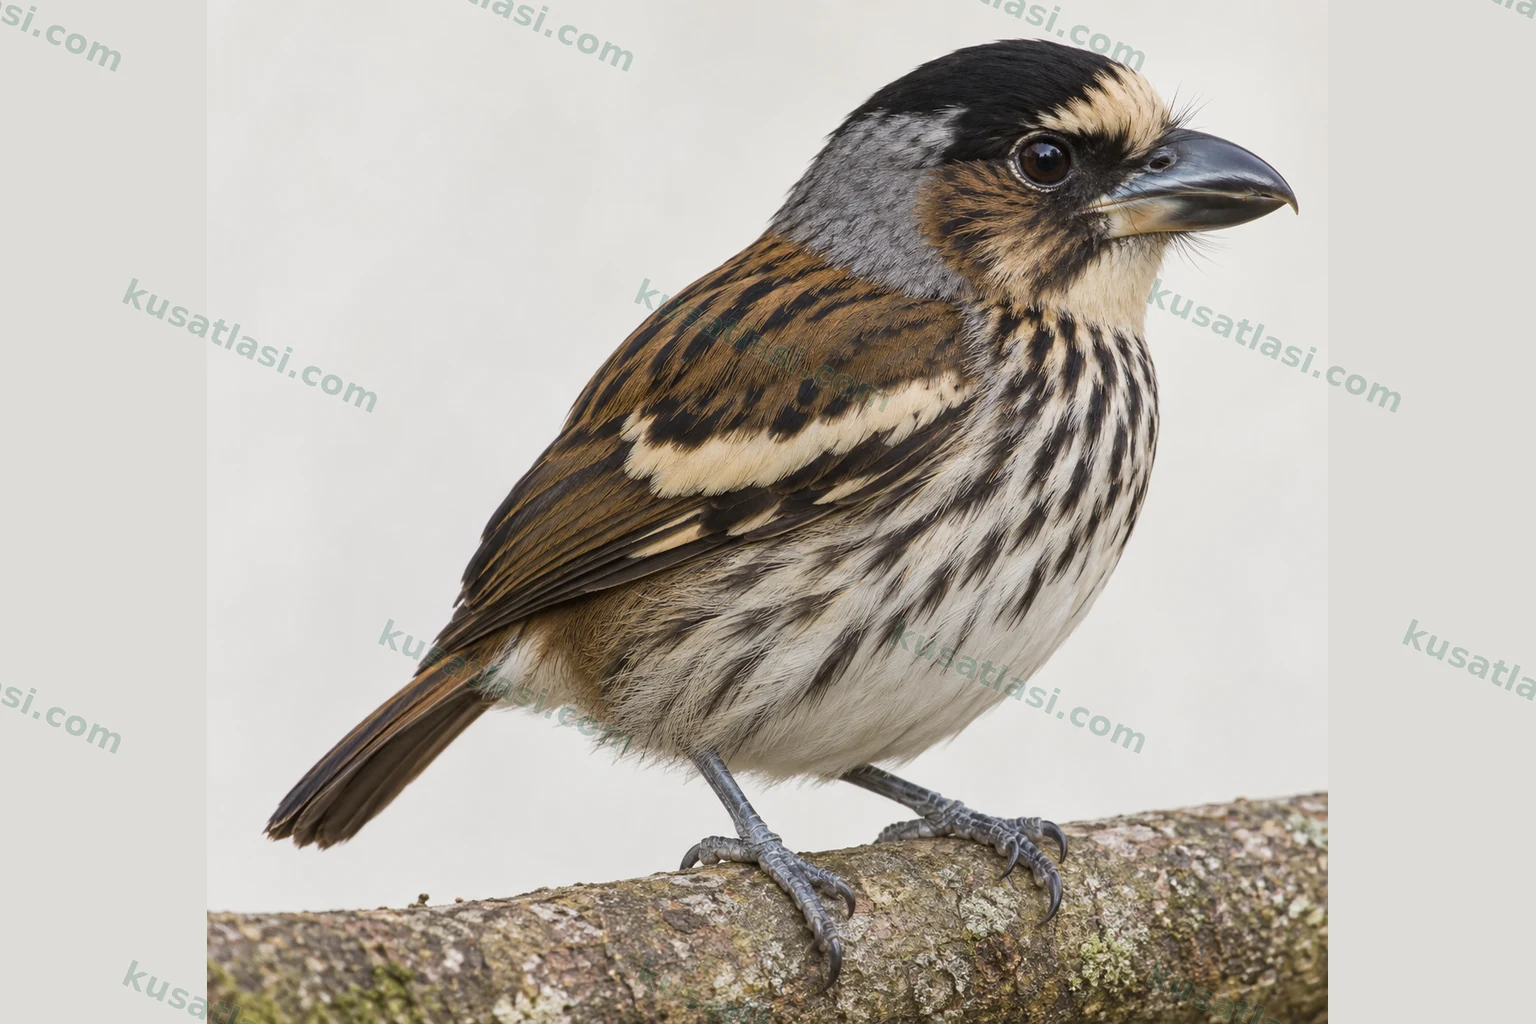
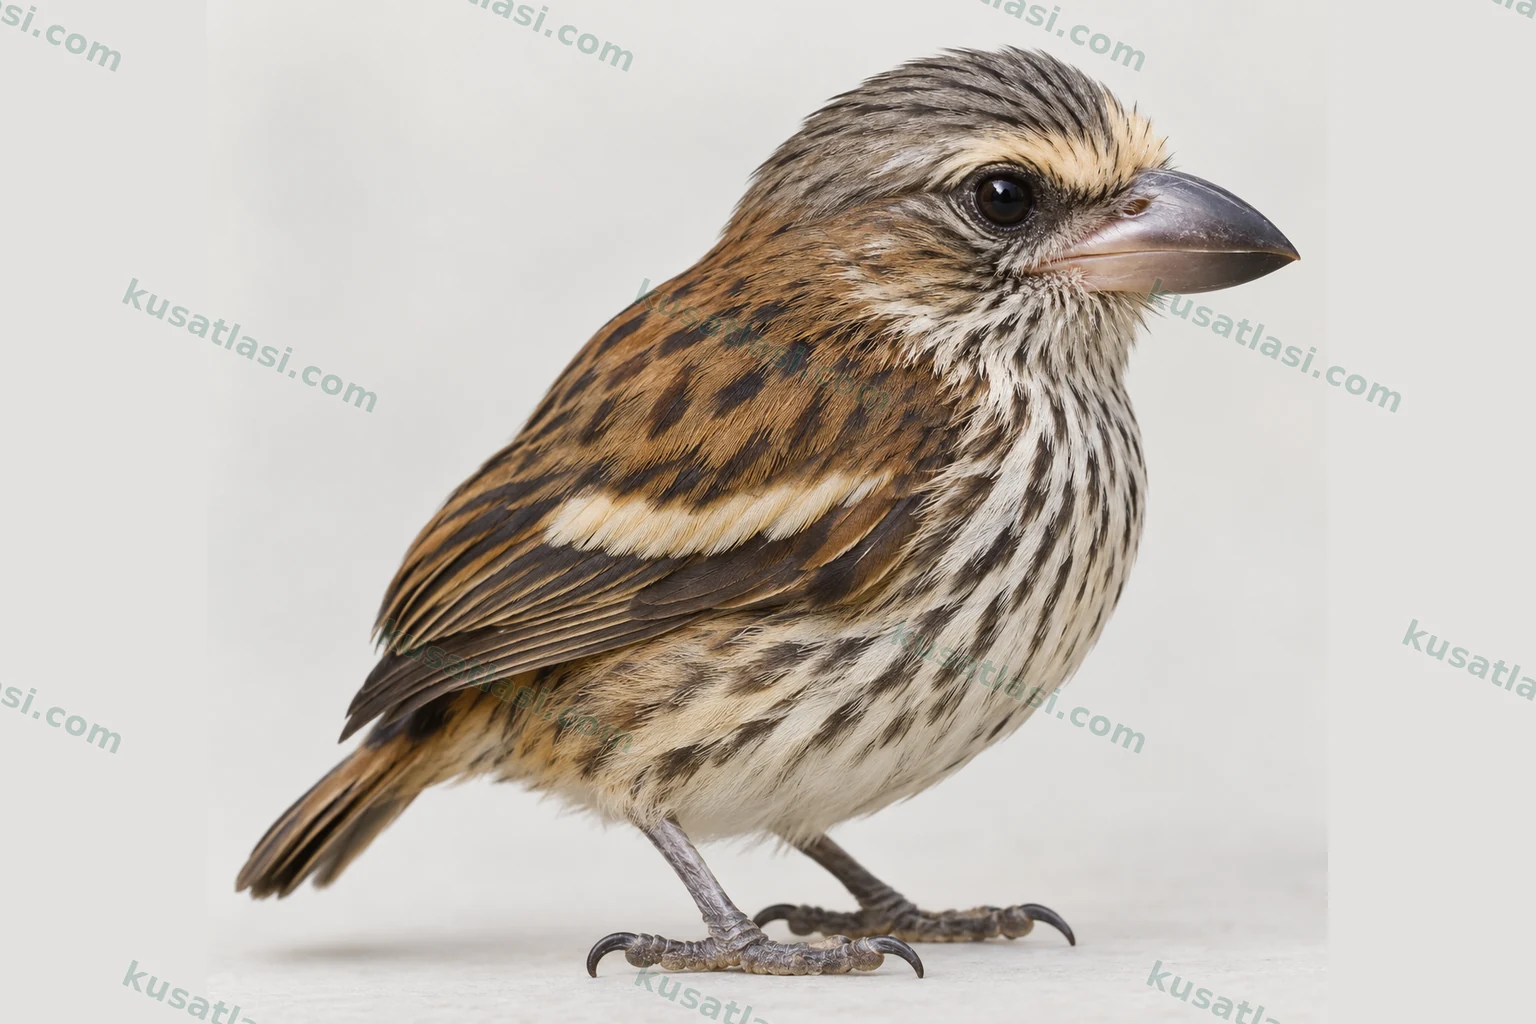
Sous bonne lumière, calotte noire du mâle et calotte plus terne finement striée de la femelle peuvent aider. Gardez les variations géographiques et d’ombre ; les jeunes peuvent ressembler aux femelles. Obscurité ou transport de proie seuls ne sexent pas sûrement.
Où le chercher dans son aire naturelle ?
Observez forêt riveraine, fourrés denses et couvert de plaine depuis le chemin. Ne faites pas sortir l’oiseau immobile et n’ouvrez pas la végétation près des nids suspendus.
L’espèce est surtout sédentaire en Afrique australe. SABAP1 donne août–février au Zimbabwe, surtout octobre–décembre, et septembre–décembre pour les pontes du KwaZulu-Natal. Le son modifie la détection ; ce calendrier n’est pas une probabilité de présence ou de reproduction commune à toute l’Afrique.
Janvier
Surtout sédentaire ; l’activité sonore peut modifier la détection. Dans l’intervalle août–février des données reproductrices de l’atlas du Zimbabwe. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Février
Surtout sédentaire ; l’activité sonore peut modifier la détection. Dans l’intervalle août–février des données reproductrices de l’atlas du Zimbabwe. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Mars
Surtout sédentaire ; l’activité sonore peut modifier la détection. Hors de l’intervalle reproducteur principal de cet atlas ; cela ne signifie pas absence de reproduction dans toute l’Afrique. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Avril
Surtout sédentaire ; l’activité sonore peut modifier la détection. Hors de l’intervalle reproducteur principal de cet atlas ; cela ne signifie pas absence de reproduction dans toute l’Afrique. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Mai
Surtout sédentaire ; l’activité sonore peut modifier la détection. Hors de l’intervalle reproducteur principal de cet atlas ; cela ne signifie pas absence de reproduction dans toute l’Afrique. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Juin
Surtout sédentaire ; l’activité sonore peut modifier la détection. Hors de l’intervalle reproducteur principal de cet atlas ; cela ne signifie pas absence de reproduction dans toute l’Afrique. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Juillet
Surtout sédentaire ; l’activité sonore peut modifier la détection. Hors de l’intervalle reproducteur principal de cet atlas ; cela ne signifie pas absence de reproduction dans toute l’Afrique. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Août
Surtout sédentaire ; l’activité sonore peut modifier la détection. Dans l’intervalle août–février des données reproductrices de l’atlas du Zimbabwe. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Septembre
Surtout sédentaire ; l’activité sonore peut modifier la détection. Dans l’intervalle août–février des données reproductrices de l’atlas du Zimbabwe. Dans l’intervalle de ponte rapporté au KwaZulu-Natal. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Octobre
Surtout sédentaire ; l’activité sonore peut modifier la détection. Dans l’intervalle août–février des données reproductrices de l’atlas du Zimbabwe. Mois de concentration des données dans cette région. Dans l’intervalle de ponte rapporté au KwaZulu-Natal. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Novembre
Surtout sédentaire ; l’activité sonore peut modifier la détection. Dans l’intervalle août–février des données reproductrices de l’atlas du Zimbabwe. Mois de concentration des données dans cette région. Dans l’intervalle de ponte rapporté au KwaZulu-Natal. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Décembre
Surtout sédentaire ; l’activité sonore peut modifier la détection. Dans l’intervalle août–février des données reproductrices de l’atlas du Zimbabwe. Mois de concentration des données dans cette région. Dans l’intervalle de ponte rapporté au KwaZulu-Natal. Ce n’est pas un pourcentage de présence ou de probabilité migratoire.
Nid, œuf et incubation
Les deux sexes peuvent construire un nid ovale ou en forme de poche, suspendu à une branche basse et doté d’une entrée latérale. Les descriptions régionales donnent un–trois œufs et une incubation de 16–17 jours par la femelle. Les deux sexes peuvent nourrir les jeunes ; les trois jeunes d’un nid réussi à Golwe sont partis à l’âge de 14–16 jours. Ce petit échantillon local ne fixe pas une durée de développement pour toutes les populations et ne marque pas la fin des soins.
Le fort son mécanique de parade vient de rémiges vibrant dans l’air. Les ailes frappées ne sont pas le mécanisme principal. De brèves vraies vocalisations existent aussi ; tout cri n’est pas alaire.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
L’Eurylaime du Cap, Smithornis capensis, est un petit oiseau compact brun et blanc qui passe facilement inaperçu dans un couvert arboré dense. Il faut associer la queue courte, le dos et le dessous striés ainsi que le bec dont la largeur se remarque surtout par-dessous. Le centre du bas du corps reste plus uni et pâle, tandis que les stries sombres de la poitrine et des flancs attirent l’attention. L’oiseau peut demeurer longtemps immobile sur une branche et donner l’impression que le lieu est vide ; la recherche ne doit donc pas se limiter aux oiseaux en mouvement.
Pendant la parade, il peut décrire un cercle serré puis revenir au perchoir. Les plumes blanches du dos, largement cachées dans une posture ordinaire, peuvent se soulever et produire un éclair clair au cours de ce vol. Toutefois, un éclair blanc ou un bruit mécanique ne confirme pas à lui seul l’espèce sans observation de l’oiseau. Des espèces voisines du même genre effectuent également des vols de parade. La comparaison la plus utile vérifie chez le même individu le bec large, les proportions compactes, les stries pectorales et la présence ou l’absence d’une plage rousse sur la poitrine.
Aspect général et posture
Le dos et la région des ailes portent des tons bruns chauds, avec des stries sombres sur le dos. Les extrémités crème clair ou chamoisées de certaines plumes alaires peuvent suggérer une barre pâle. Le dessous est principalement blanchâtre ; les côtés de la poitrine et les flancs peuvent montrer des nuances claires plus chaudes et des stries sombres. Un centre du ventre plus uni ne signifie pas que tout le dessous est dépourvu de marques. Les ombres des feuilles doivent être distinguées des véritables stries en vérifiant de nouveau le dessin lorsque l’oiseau change d’angle.
La largeur du bec n’est pas toujours évidente de profil. Une vue par-dessous ou sous un angle frontal adapté révèle mieux sa forme large et aplatie. Il n’est pas nécessaire de faire envoler l’oiseau pour obtenir cet angle : il vaut mieux attendre un déplacement naturel. La queue courte et les proportions compactes de la tête et du corps aident à le distinguer de nombreux insectivores fins et allongés. Le gonflement du plumage, l’angle et une branche interposée peuvent modifier ces proportions ; la longueur de queue visible sur une seule photographie n’est pas une mesure en elle-même.
Les formes géographiques peuvent varier par leurs nuances. Plutôt que d’attribuer avec certitude une sous-espèce à partir d’un seul éclairage, on note ensemble le lieu et le dessin réellement observé.
Mâles, femelles et jeunes
La description spécialisée actuelle donne au mâle adulte une calotte noire, un front chamois pâle et une nuque plus grise. La femelle lui ressemble, mais sa calotte peut être d’un gris plus terne, finement strié de sombre. Une calotte femelle plus claire est notamment signalée dans certaines formes géographiques. Ces différences exigent un bon angle et une bonne lumière. Tout oiseau dont la calotte semble noire dans l’ombre des feuilles n’est pas un mâle ; celle d’un mâle peut aussi paraître plus claire sous une lumière forte.
Les jeunes peuvent ressembler globalement à la femelle, avec des tons chauds pâles du front et des stries de la calotte moins marqués. Il ne s’agit pas d’une clé détaillée permettant de déterminer l’âge en jours. Un plumage désordonné ou une courte dissimulation après la sortie du nid ne donne pas à lui seul un âge précis. Les mesures de croissance d’une étude scientifique sur les poussins ne sont pas non plus des longueurs d’adultes à appliquer à tous les oiseaux photographiés. Voir réellement un parent nourrir le jeune peut soutenir l’interprétation du plumage ; la simple proximité d’un autre oiseau n’est pas une preuve de parenté.
Les études de reproduction distinguent l’incubation assurée par la femelle de la participation des deux sexes au nourrissage. Un individu portant de la nourriture ne doit donc pas être nommé mâle sur ce seul comportement. L’aspect de la calotte, l’angle de vue et le comportement de l’individu suivi s’évaluent ensemble. Si une attribution fiable du sexe reste impossible, noter un adulte est plus utile que de forcer l’incertitude en mâle ou femelle.
Aspect en vol
La parade peut comporter un virage serré autour d’une branche suivi d’un retour au perchoir. Les plumes blanches du dos découvertes à cette occasion peuvent donner un bref éclair dans la forêt sombre. Cet aspect diffère de celui d’un vol ordinaire de recherche alimentaire. L’absence de bruit de parade ou de cette même plage blanche pendant un déplacement quotidien n’exclut pas l’espèce. La queue courte, le bec large et la poitrine striée vus au perchoir complètent l’observation en vol.
Les recherches expérimentales ont montré que le bruit de parade provient de certaines rémiges qui vibrent sous l’effet de l’écoulement de l’air. Ce mécanisme diffère de l’explication simplifiée selon laquelle les ailes se frapperaient entre elles. Les mouvements alaires de la parade ne sont pas convertis en vitesse de vol ordinaire ou de migration. Le mouvement du bout de l’aile mesuré dans l’étude ne signifie pas que tout le corps avance à cette vitesse.
Voix et comportement
La forte vibration mécanique de la parade facilite le repérage de l’espèce. Une comparaison écrite comme « krrrr » approche la structure du son, mais ne restitue pas entièrement le rythme, la puissance et la hauteur du son naturel. Le fait que ce bruit soit produit par les ailes ne signifie pas que tous les cris de l’oiseau ont une origine alaire. Les chercheurs ont aussi signalé de véritables vocalisations plus courtes, audibles à faible distance avant la parade. Ces deux catégories de sons ne doivent pas être confondues dans l’explication.
En dehors des parades, l’oiseau peut rester immobile à couvert et passer inaperçu. L’atlas d’Afrique australe indique que les signalements plus nombreux au printemps et au début de l’été pourraient être liés à une activité sonore accrue. L’entendre davantage ne démontre pas nécessairement que le nombre d’oiseaux arrivant d’ailleurs augmente ce mois-là. Observer une parade naturelle ne nécessite ni diffusion d’enregistrements, ni provocation, ni coupe de branches. Laisser un individu silencieux sur son perchoir offre une observation plus longue pour l’identifier sans perturber son utilisation du lieu.
Espèces ressemblantes
1. Smithornis rufolateralis peut prêter à confusion par sa silhouette compacte et sa parade semblable. Dans la comparaison de Cornell, la plage rousse de la poitrine constitue l’un des indices utiles pour séparer les deux espèces. L’Eurylaime du Cap ne possède pas cette plage pectorale rousse bien définie ; les stries sombres sur fond clair et le bec large sont vérifiés ensemble. Les deux congénères pouvant produire un son de parade avec les ailes, un bruit mécanique ne permet pas à lui seul de choisir l’espèce.
2. Smithornis sharpei est un autre congénère proche à comparer. Cornell mentionne également l’absence d’aspect roux de la poitrine pour en distinguer l’Eurylaime du Cap. La calotte plus grise d’une femelle d’Eurylaime du Cap ne suffit pas à conclure à Smithornis sharpei. La poitrine, les ailes et le bec doivent être vus ensemble ; une vue insuffisante ne reçoit pas un nom d’espèce uniquement parce qu’une couleur évoque ce nom.
Répartition mondiale
L’Eurylaime du Cap présente une répartition morcelée dans les forêts et boisements denses favorables d’Afrique subsaharienne. Les régions de Sierra Leone, du Liberia et du Ghana à l’ouest, le Cameroun, le Gabon et le bassin du Congo au centre, puis l’Ouganda, le Kenya, la Tanzanie, la Zambie, le Malawi, le Mozambique et d’autres boisements adaptés à l’est et au sud constituent le cadre régional général. Des formes géographiques sont aussi signalées en Angola et au Zimbabwe. Cela ne signifie pas que toutes les terres intermédiaires soient occupées en continu.
Dans la région australe, les sites à couvert dense du Limpopo et du KwaZulu-Natal ainsi que l’est de l’Eswatini sont importants. Les signalements autour du Zambèze et dans le nord-est de la Namibie s’interprètent avec le caractère local et fragmenté des sites. Le fait que les atlas décrivent un oiseau facile à manquer montre que peu de données ne signifie pas toujours peu d’oiseaux. À l’inverse, l’absence de signalements ne permet pas de créer une vaste aire de résidence certaine. Les cellules de prédiction et d’observation de la carte ne constituent pas la même preuve qu’une zone de reproduction confirmée.
Situation dans l’aire naturelle
L’évaluation mondiale de 2024 donne la catégorie Préoccupation mineure, LC. Pour la région d’évaluation Afrique du Sud, Lesotho et Eswatini, la catégorie de 2025 est Vulnérable, VU. L’état mondial peut différer de celui d’une région plus petite. La perte du sous-bois dense et la fragmentation forestière sont particulièrement importantes dans l’analyse régionale. Une ancienne source ne reconnaissant pas de menace mondiale ne rend pas négligeable la perte locale d’habitat.
La description régionale actuelle distingue la contraction d’aire estimée par modélisation, la modification de l’habitat et la probabilité de signalement. Un pourcentage de réduction d’aire modélisée n’est pas présenté comme une perte d’individus directement dénombrés. Le maintien des données dans les espaces protégés ne démontre pas non plus que tous les sites non protégés sont dans le même état. Pour juger la population en sécurité, il faut considérer l’état du couvert et des recherches répétées plutôt qu’une seule rencontre réussie.
Migration
Les descriptions spécialisées et les atlas d’Afrique australe traitent l’espèce comme essentiellement résidente ; aucune route intercontinentale régulière n’est vérifiée. Une audibilité ou un nombre de signalements saisonniers plus élevés ne constitue pas automatiquement une preuve de migration. Les parades reproductrices peuvent rendre plus détectables des oiseaux qui passent inaperçus lorsqu’ils sont silencieux. La présence et la probabilité de détection ne sont donc pas représentées comme des notions équivalentes dans le calendrier.
Il n’est pas davantage supposé que chaque individu demeure toute l’année sur la même branche ou dans le même petit fragment de forêt. Ce travail n’a pas vérifié de trajets individuels précis entre populations ; les pays ne sont pas reliés par des lignes inventées. Les données de reproduction du Zimbabwe de l’atlas austral et les mois de ponte du KwaZulu-Natal gardent leurs contextes régionaux respectifs. Une période mensuelle signalée dans un pays ne s’applique pas telle quelle à toutes les populations d’Afrique occidentale et orientale.
Milieu de reproduction
L’Eurylaime du Cap est associé aux broussailles denses, aux forêts riveraines et au sous-bois des boisements. Il peut aussi utiliser l’étage moyen des forêts sempervirentes de basse altitude. La seule présence de grands arbres n’explique pas la qualité d’un site ; la continuité et la structure du couvert utilisé comptent également. L’évaluation régionale actuelle examine la dégradation du sous-bois et l’isolement des fragments forestiers. Un grand arbre isolé dans un parc ouvert ne correspond pas au même habitat qu’un boisement naturel dense.
Emplacement du nid
Les deux sexes peuvent construire le nid ovale ou en forme de sac suspendu à une branche basse. L’entrée est latérale ; écorce, feuilles sèches, brindilles fines, herbes et radicelles figurent parmi les matériaux. Des fragments de toile d’araignée peuvent aussi maintenir la structure. La description régionale donne des exemples situés à environ 1,5–3 m du sol, sans imposer cette hauteur à tous les nids. Le nid peut être près d’un ruisseau ou d’un axe humide sans être nécessairement suspendu au-dessus d’une eau courante.
La description régionale signale habituellement un–trois œufs et une incubation d’environ 16–17 jours par la femelle. Une petite étude de terrain dans le nord-est de l’Afrique du Sud a observé l’incubation féminine et le nourrissage par les deux sexes. Dans un nid réussi, trois jeunes éclos à des jours différents sont partis à l’âge de 14–16 jours (observation de Golwe en 2007 ; ce n’est pas une durée fixe pour toutes les populations). L’incubation et le développement des jeunes au nid sont deux intervalles distincts qui ne se remplacent pas.
Utilisation quotidienne de l’espace
L’oiseau peut rester longtemps immobile au perchoir, puis rechercher de la nourriture à couvert ou effectuer de courts vols. Il peut être particulièrement difficile à détecter dans des broussailles riveraines denses. Regarder ses mouvements naturels depuis un chemin existant donne une identification plus fiable que tenter de le faire sortir. Si un nid suspendu est trouvé, on ne coupe pas les plantes voisines pour l’exposer, on n’approche pas de l’entrée et on ne touche pas les jeunes. Un nid qui semble vide de loin ne l’est pas nécessairement ; une femelle silencieuse peut rester à l’intérieur.
Que mange-t-il ?
Les descriptions spécialisées indiquent surtout de petits invertébrés. Les insectes, criquets, chenilles et araignées figurent parmi les exemples signalés. Le bec large ne signifie pas une dépendance à un seul groupe de proies. L’espèce n’est décrite ni comme mangeant uniquement des insectes en vol ni comme ne prenant que des animaux au sol. Les listes régionales ne sont pas le régime complet de chaque population africaine ; les proies disponibles peuvent varier avec le couvert utilisé et la saison.
L’étude sud-africaine des jeunes a observé l’apport de petites proies, pour la plupart molles. Chenilles, petits papillons, papillons de nuit et araignées appartiennent au contexte de cette observation. Ces données ne montrent ni que chaque adulte ne choisit que ces aliments toute l’année, ni que tous les nids reçoivent des pourcentages fixes de proies. Lorsqu’un petit objet dans le bec ne peut être distingué, on note sa forme générale plutôt que de lui donner un nom précis d’insecte.
Comment chasse-t-il ?
La description régionale spécialisée rapporte une alimentation au sol, dans les arbres et parfois en vol. On peut observer le départ vers une proie depuis les alentours d’un perchoir bas, les mouvements à couvert et le retour au perchoir. Un vol circulaire de parade n’est pas le même comportement qu’un vol de capture ; sans avoir réellement vu une proie transportée, chaque bref retour ne doit pas être noté comme chasse. L’étage de végétation et le lieu de capture peuvent être consignés séparément.
La contribution d’un adulte qui nourrit les jeunes s’évalue pour la période effectivement suivie. Que le mâle ait apporté davantage de nourriture dans une étude ne signifie pas que la femelle ne nourrisse jamais. Des soins majoritairement masculins dans un nid ne deviennent pas un pourcentage immuable pour toute l’espèce. Retirer feuilles et branches pour mieux voir l’entrée peut perturber les apports naturels ; des proies non vues ne doivent pas être enregistrées comme zéro proie.
Le bruit de parade provient des plumes des ailes
Une recherche expérimentale publiée en 2016 a examiné l’origine du bruit mécanique marqué du vol de parade de l’Eurylaime du Cap. Les images à grande vitesse, le son synchronisé et les essais en soufflerie soutiennent une vibration de certaines rémiges sous l’effet du courant d’air. Le choc des ailes entre elles n’est pas le mécanisme principal montré par les résultats. Comment le son est produit et pourquoi cette communication a évolué sont deux questions différentes ; les explications proposées pour la seconde ne sont pas présentées comme des conclusions définitives.
Les plumes blanches ne se voient pas dans toutes les postures
Les plumes blanches du dos exposées pendant la parade peuvent rester cachées lorsque l’oiseau est normalement perché. Le récit de terrain de l’auteur de la recherche mentionne lui aussi ce bref éclair blanc. L’absence de grande plage blanche sur un oiseau posé ne conduit pas immédiatement à choisir une autre espèce. Examiner le même individu perché puis en parade est plus fiable que comparer des photographies indépendantes en attendant une apparence toujours identique.
Quelques nids ne donnent pas un taux pour toute l’espèce
Parmi les quatre nids actifs suivis à Golwe en 2007, un a produit avec succès trois jeunes. L’étude fournit des données précieuses sur les pertes de nids et les soins, mais ce petit échantillon local ne représente pas le succès reproducteur de toute l’Afrique. Dans cette même recherche, la femelle a incubé et les deux sexes ont nourri les jeunes. Un adulte apportant davantage de proies ne signifie pas que l’autre n’a aucun rôle dans les soins.
Fréquence de signalement et augmentation numérique diffèrent
L’oiseau peut rester longtemps immobile sous le couvert forestier, mais devient plus facile à détecter lorsqu’il parade. L’explication, dans les atlas, de signalements plus nombreux au printemps et au début de l’été tient aussi compte de l’activité sonore accrue. Cette hausse ne signifie pas directement une migration ou davantage de couples reproducteurs. La catégorie mondiale LC et la catégorie VU de la région australe concernent également des échelles différentes ; voir un oiseau à un endroit ne détermine pas l’état de conservation de toute la région.