Oiseaux du monde Statut UICNLC · Préoccupation mineureCatégorie mondiale de l'UICN. BirdLife v10 (2025) ; correspondance taxonomique : AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L'année de la liste n'est pas la date d'évaluation de l'espèce. Source et méthode · BirdLife OrdrePasseriformesPassereaux FamilleAcrocephalidaeAcrocephalidae
Hypolaïs jaune
Iduna natalensis
Un passereau au dessous jaune dans un couvert humide et dense ; évaluez ensemble le long bec, le dos olive et la calotte variable selon la géographie.
Biométrie
Longueur
Mâle13 cm
Femelle13 cm
Valeur commune à l’espèce
Longueur de l’aile
Mâle6,15 cm
Femelle6,15 cm
Valeur commune à l’espèce
Poids
Mâle10–11,5 g
Femelle10,6 g
Femelle: 10,6 g. Valeur de la compilation publiée de Lislevand et al. (2007), n=4. La ligne ne précise ni localité, saison, âge ou sous-espèce ; elle ne représente pas nécessairement toutes les populations. La compilation utilise surtout des moyennes ; la page originale et le calcul de cette valeur n’ont pas été vérifiés indépendamment. La valeur de l’autre sexe provient d’une autre source et ne permet pas de conclure à une différence sexuelle.
Hypolaïs jaune
Fourrés humides du centre-ouest et de l’est-sud de l’AfriqueGuide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreObservez ensemble le dessous jaune et le dos olive.
La calotte sombre ou olive varie selon les sous-espèces.
Des notes initiales rapides précèdent le chant tremblé ; attribuez le son au bon individu.
Comparer mâle et femelle
 FemelleMâle
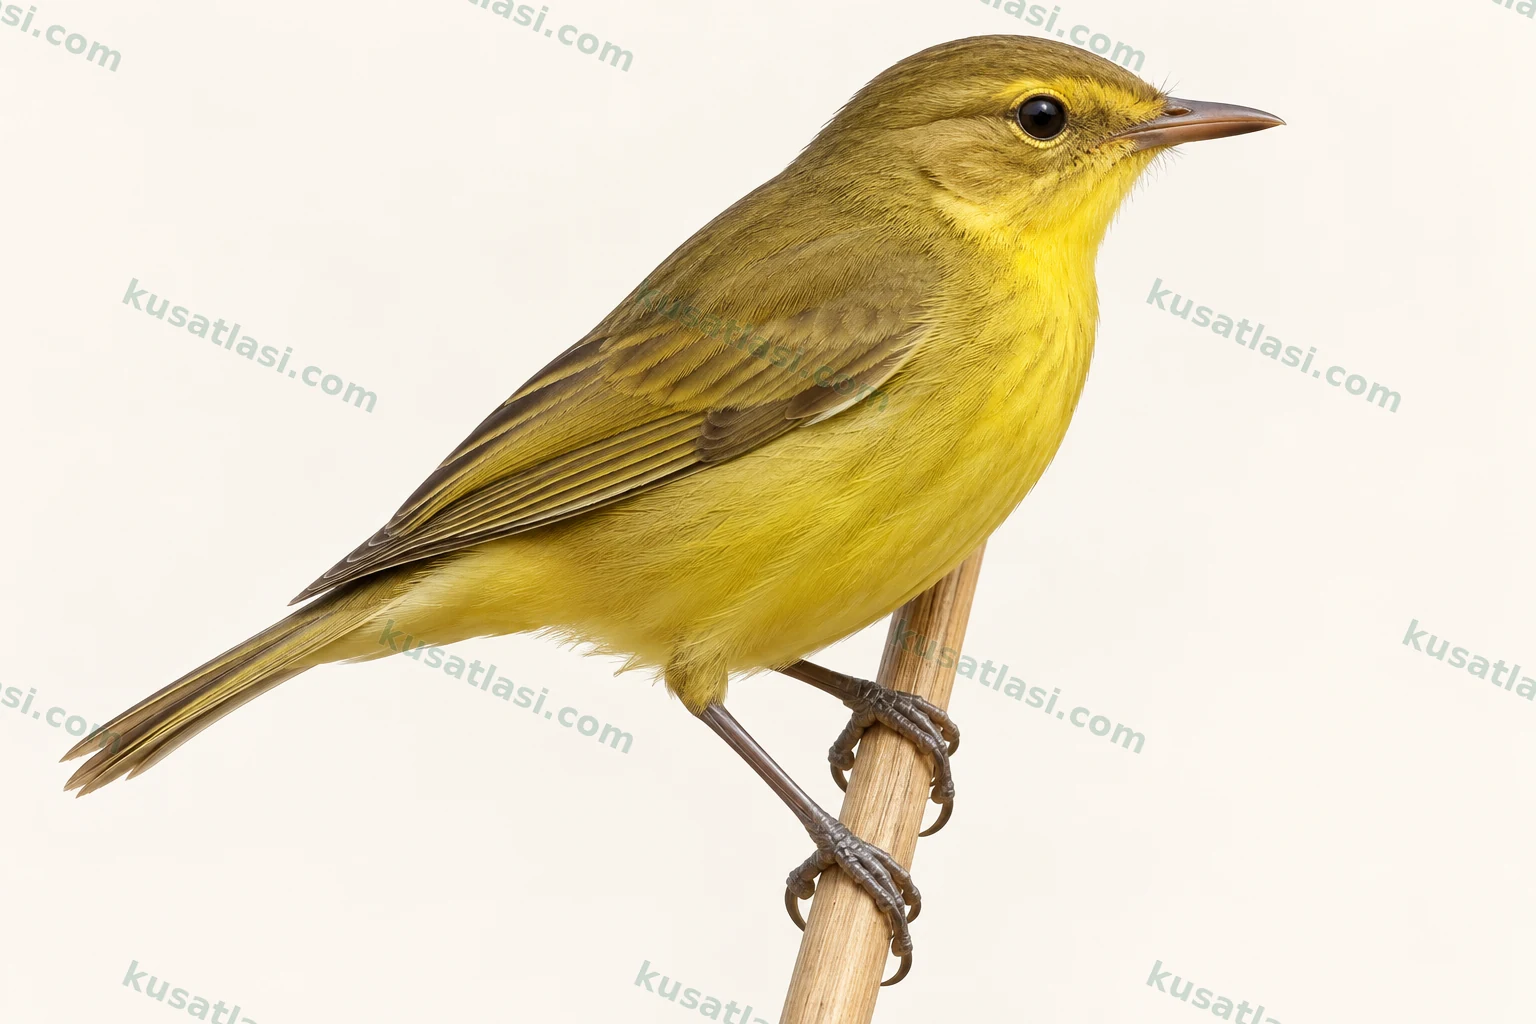
Aucune clé certaine du sexe ou du plumage juvénile n’a été vérifiée ; la noirceur de la calotte varie géographiquement.
Où le chercher dans son aire naturelle ?
Observez le couvert dense autour des zones humides, les buissons riverains et les fourrés des hautes terres humides.
L’atlas du sud-est de l’Afrique comporte des mentions de reproduction de septembre à avril, concentrées en novembre–décembre. Il ne s’agit pas de mois de ponte communs à toute l’aire naturelle.
Janvier
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Sud-est de l’Afrique, atlas régional : ce mois se situe dans l’intervalle des mentions d’activité reproductrice.
Février
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Sud-est de l’Afrique, atlas régional : ce mois se situe dans l’intervalle des mentions d’activité reproductrice.
Mars
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Sud-est de l’Afrique, atlas régional : ce mois se situe dans l’intervalle des mentions d’activité reproductrice.
Avril
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Sud-est de l’Afrique, atlas régional : ce mois se situe dans l’intervalle des mentions d’activité reproductrice.
Mai
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Juin
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Juillet
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Août
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Septembre
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Sud-est de l’Afrique, atlas régional : ce mois se situe dans l’intervalle des mentions d’activité reproductrice.
Octobre
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Sud-est de l’Afrique, atlas régional : ce mois se situe dans l’intervalle des mentions d’activité reproductrice.
Novembre
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Sud-est de l’Afrique, atlas régional : ce mois se situe dans l’intervalle des mentions d’activité reproductrice. Dans la même région de l’atlas, les mentions reproductrices se concentrent durant ces mois ; le chant influe aussi sur la fréquence de détection.
Décembre
L’espèce est essentiellement résidente ; des changements d’altitude après reproduction sont signalés dans certaines régions. Sud-est de l’Afrique, atlas régional : ce mois se situe dans l’intervalle des mentions d’activité reproductrice. Dans la même région de l’atlas, les mentions reproductrices se concentrent durant ces mois ; le chant influe aussi sur la fréquence de détection.
Nid, œuf et incubation
L’atlas du sud-est africain rapporte une activité reproductrice de septembre à avril, concentrée en novembre–décembre. Structure du nid, nombre habituel d’œufs, durée d’incubation et âge du premier vol en jours n’ont pas été vérifiés dans un contexte suffisant.
Plusieurs notes initiales rapides précèdent un chant tremblé ; l’oiseau se repère plus facilement lorsqu’il chante.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
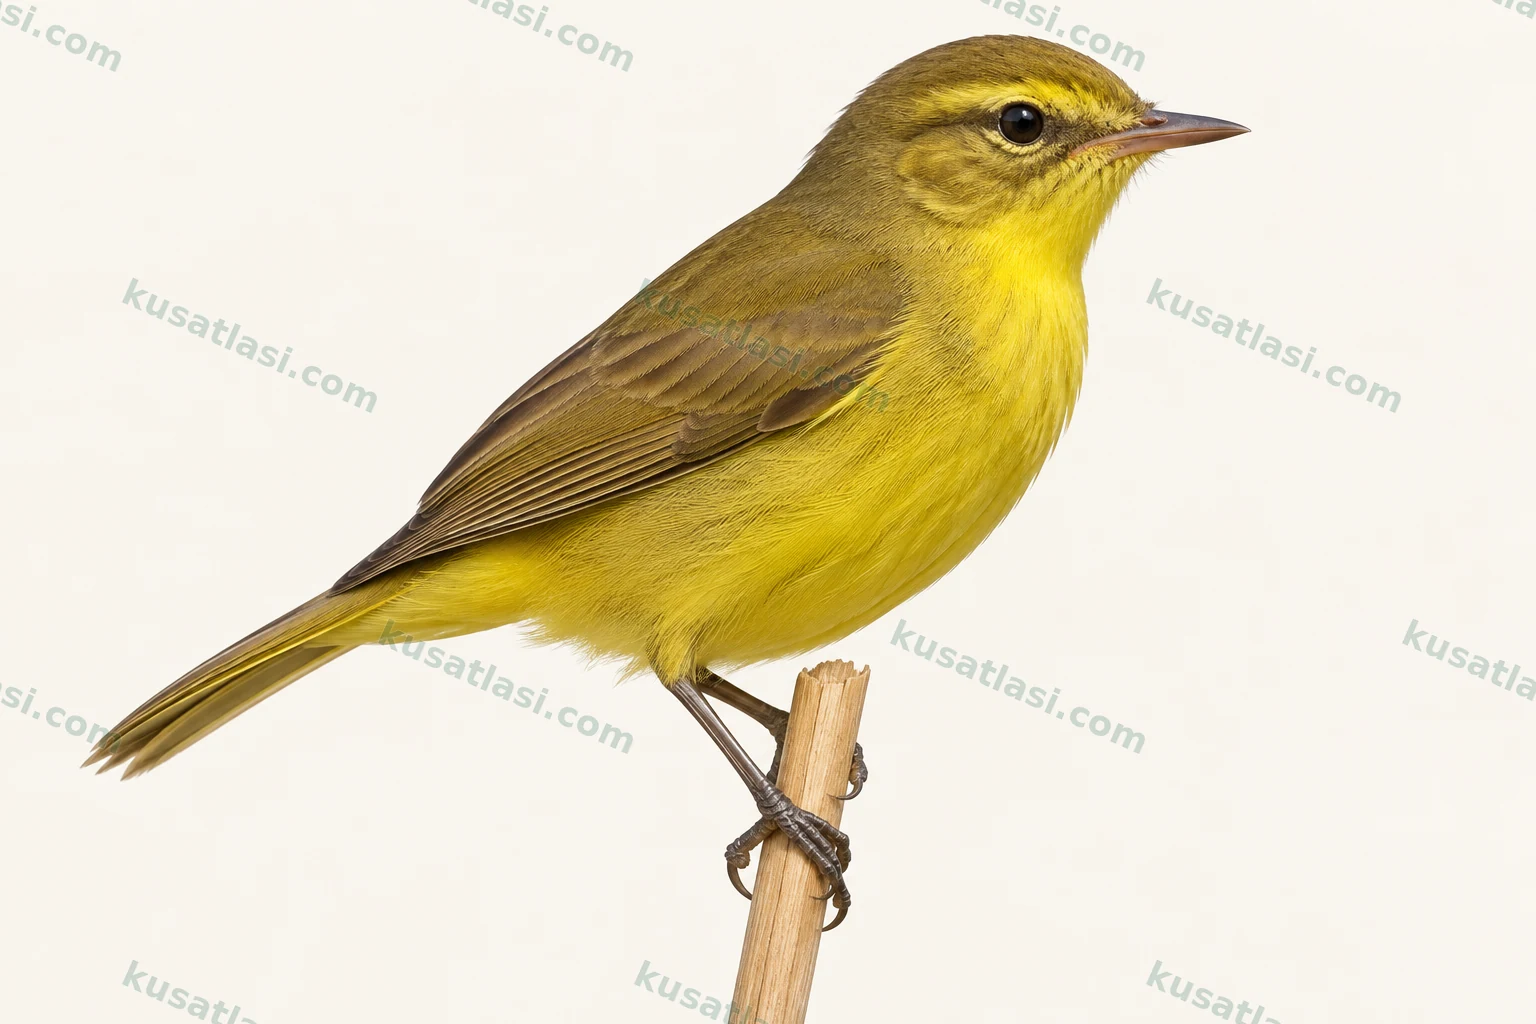
L’Hypolaïs jaune Iduna natalensis est un passereau aux parties inférieures jaunes et au dos vert olive qui se cache dans la végétation dense. Son bec relativement long, le jaune marqué du dessous et la calotte s’examinent ensemble. Celle-ci est presque noire chez certaines sous-espèces et d’un ton olive semblable au dos chez d’autres. Une tête noire ne peut donc être exigée dans toute l’aire de répartition. Une tête paraissant sombre sur une image n’équivaut pas à des plumes réellement sombres : l’ombre peut fortement modifier cet aspect.
Les fourrés humides et le couvert dense autour des zones humides sont des lieux d’observation importants. L’oiseau se détecte plus difficilement lorsqu’il ne chante pas. Une brève vue dans la végétation basse peut ne révéler que le dessous jaune ; ce seul signe ne suffit pas à une identification certaine. Le bec, le rapport des couleurs entre tête et dos et le milieu doivent être observés chez le même individu. Le chant, avec de brèves notes initiales suivies d’un passage tremblé, aide, mais d’autres oiseaux peuvent se faire entendre en même temps.
Aspect général et posture
Le dessous jaune et le dos olive forment la combinaison fondamentale. La noirceur de la calotte variant selon la géographie, l’apparence d’une région ne sert pas de clé de couleur pour toutes les sous-espèces. Le bec d’allure longue et les déplacements dans le couvert bas contribuent à la distinction d’autres petits oiseaux jaunes. Les reflets verts des feuilles peuvent verdir le dessous ; il faut réexaminer la couleur du corps quand l’oiseau traverse une ouverture.
Chez deux spécimens mâles examinés à Inyanga en 1964, l’œil a été noté brun foncé, la mandibule supérieure noire et l’inférieure brunâtre rosé. Les pattes étaient décrites couleur corne sombre ou noires. Cette note directe fournit un contexte local, sans établir que ces couleurs sont invariables dans chaque sous-espèce, âge et sexe. La surface du bec décrite importe particulièrement : les couleurs des mandibules supérieure et inférieure ne doivent pas être inversées.
Mâles, femelles et jeunes
Cette recherche n’a pas permis de vérifier une clé de couleur propre à l’espèce séparant sûrement les sexes par leur aspect. La noirceur de la tête variant géographiquement, considérer un oiseau à tête sombre comme mâle et un autre à tête plus verte comme femelle peut tromper. Deux individus réunis dans le même habitat peuvent présenter des tons différents selon la lumière et l’angle de la tête. Un suivi fiable du comportement reproducteur peut apporter d’autres renseignements ; être côte à côte ne prouve pas le sexe.
Les sources directes étaient également insuffisantes sur la mue juvénile et les différences certaines avec les adultes. Un plumage paraissant plus pâle ne constitue pas automatiquement un signe de jeunesse. Derrière la végétation, les proportions des ailes et de la queue restent incomplètement visibles ; la netteté d’une photographie ne détermine pas l’âge. Si la vue est insuffisante, l’espèce peut être enregistrée sans ajouter d’âge ni de sexe.
Le sexe des spécimens mâles de l’ancienne étude de musée ne repose pas sur une simple différence de couleur supposée d’après l’apparence. Ces données ne fournissent pas automatiquement des étiquettes pour les photographies de terrain actuelles. La variabilité géographique doit être respectée, notamment lorsque l’on compare des sous-espèces de pays différents. Une couleur de tête conforme à la population locale n’est pas non plus, à elle seule, une identification certaine de sous-espèce.
Aspect en vol
Lorsque l’oiseau quitte un couvert pour un autre groupe de plantes, le rapport bec–corps et la queue peuvent apparaître brièvement. Toutefois, aucune clé de terrain vérifiée du dessin détaillé des rémiges n’a été trouvée pour cette espèce ; une seule image d’aile claire ou sombre ne permet donc pas une identification certaine. Il importe de voir le dessous jaune avec la calotte et les couleurs générales du dessus. Un oiseau s’éloignant à pied ou en grimpant dans le couvert n’a pas forcément volé.
La notice de l’atlas explique qu’un individu dérangé peut descendre dans la végétation et s’éloigner en restant caché. Il ne s’agit pas d’une mesure de faible capacité de vol. Les déplacements après reproduction vers des altitudes inférieures, chez une espèce résidente dans certaines régions, sont également distincts d’un court vol quotidien. Aucune donnée de suivi de cette nature n’a été vérifiée pour ce travail.
Voix et comportement
La notice spécialisée de terrain décrit plusieurs notes initiales rapides suivies d’un passage tremblé. L’atlas régional indique aussi que l’oiseau se repère plus facilement lorsqu’il chante. Un surcroît de mentions estivales ne signifie donc pas nécessairement l’arrivée de nouveaux oiseaux : l’activité vocale peut changer la détectabilité. Une seule description du chant n’est pas supposée couvrir tous les types de cris. Pour s’assurer qu’un son appartient à l’individu visible, on suit sa direction en même temps que le comportement de l’oiseau.
Il demeure caché dans les parties basses de la végétation et peut descendre et progresser dans le couvert en cas de danger. Ne pas se montrer à découvert ne démontre pas son absence. Attendre en silence et laisser de l’espace à ses déplacements naturels permet une observation plus fiable qu’ouvrir les fourrés pour le chercher. Chant, alimentation et nidification doivent être notés séparément. Un poste de chant ne devient pas un nid confirmé sans observation d’œufs ou de jeunes.
Espèces pouvant être confondues
1. Iduna similis, appelée Mountain Yellow-Warbler en anglais, est une proche espèce d’hypolaïs jaune. Chez des oiseaux jaunes semblables, on compare ensemble calotte, bec, combinaison générale du dessus et du dessous et habitat local. Certaines sous-espèces d’Iduna natalensis ont une tête plus sombre et d’autres olive ; aucune règle unique de couleur de tête ne doit ignorer cette variabilité. Un oiseau jaune vu en altitude ne suffit pas non plus à identifier Mountain Yellow-Warbler.
2. Les rousserolles présentes autour de la même zone humide peuvent prêter à confusion lors d’aperçus dans le couvert dense. Pour Iduna natalensis, le dessous franchement jaune, le dessus olive et le long bec s’évaluent chez le même individu. Associer le son d’un oiseau à l’image d’un autre peut créer une fausse identité. Si l’on ne voit qu’une queue ou un fragment d’aile, mieux vaut conserver un niveau d’identification plus général que forcer une certitude.
Répartition mondiale
Dans l’ouest et le centre de son aire afrotropicale, des populations occupent les environs du Nigeria–Cameroun, le Gabon et l’Angola ; à l’est, elles s’étendent des environs du Soudan–Éthiopie jusqu’à la Tanzanie et plus au sud. Les notices de sous-espèces associent batesi, massaica, major et natalensis à des régions différentes. Cette vaste géographie n’est pas un habitat unique et continu : répartition des fourrés humides et altitude comptent. Une même couleur de tête n’est pas attendue dans toutes ces populations.
Situation dans l’aire naturelle
La liste actuelle la classe en Préoccupation mineure. L’atlas d’Afrique australe met en avant les hautes terres de l’est du Zimbabwe, les ceintures de pentes et de montagnes de l’est de l’Afrique du Sud, le KwaZulu-Natal et l’Eastern Cape. Des milieux inadaptés, comme les formations épineuses sèches de la vallée de la Tugela, sont associés à des lacunes locales. Quelques mentions éloignées n’établissent ni une population résidente permanente ni une nouvelle zone de reproduction. La structure locale de l’habitat explique davantage qu’une simple liste de pays.
Déplacements saisonniers
L’espèce est considérée comme essentiellement résidente. Les modèles saisonniers de l’atlas n’ont pas montré de grands mouvements réguliers, tandis que d’autres publications régionales décrivent des descentes hivernales après reproduction. Ces résultats ne sont pas nécessairement contradictoires : qu’un jeu de données ne détecte pas de mouvement ne prouve pas l’inexistence de changements locaux d’altitude. Davantage de mentions estivales peuvent aussi refléter une détection facilitée par le chant. Aucun itinéraire, enchaînement de pays ni distance migratoire n’ayant été vérifié, on ne les représente pas sur la carte.
Habitat de reproduction
Elle utilise les fourrés humides, les formations denses le long des cours d’eau et des ravins, les lisières de forêt sempervirente et le couvert entourant les roselières. Les mentions de l’atlas ressortent dans les hautes terres humides de l’est du Zimbabwe. Le travail historique de terrain à Inyanga signale aussi de petits buissons et des fourrés au sein des prairies. Ensemble, ces descriptions montrent que plusieurs combinaisons de couvert peuvent être utilisées dans une même région ; la seule présence d’une surface d’eau ne décrit pas entièrement l’habitat.
Emplacement du nid
L’atlas traite des ressemblances de construction du nid avec les rousserolles, mais cette recherche n’a pas pu préciser, pour l’espèce actuelle, la structure du nid, le nombre habituel d’œufs et la durée d’incubation en jours grâce à des sources primaires ou spécialisées suffisantes. Une moyenne de 1,7 œuf dans une compilation de traits de vie n’est pas le nombre d’œufs d’un nid. La carte ne présente donc ni œufs fractionnaires ni durée empruntée à une autre espèce. Les mentions régionales de reproduction restent valides ; le manque de chiffres ne signifie pas l’absence de reproduction.
Utilisation quotidienne du milieu
Elle se déplace dans le bas des buissons et au sein du couvert dense. Être plus visible en chantant ne signifie pas passer toute la journée sur des perchoirs dégagés. La notice de l’atlas décrit l’oiseau dérangé qui descend et se cache. L’observateur peut noter structure végétale, proximité de l’eau et altitude, mais ces éléments ne définissent pas un emplacement exact de nid. Ouvrir la végétation ou diffuser des cris à répétition pour voir l’oiseau peut modifier son utilisation naturelle du milieu.
Que mange-t-elle ?
La fiche taxonomique actuelle d’AVONET associe l’alimentation de base aux invertébrés. Le classement de la compilation spécialisée parmi les oiseaux glanant des invertébrés sur la végétation va dans le même sens. Ces informations ne donnent ni la part annuelle de groupes d’insectes particuliers ni la preuve d’aliments identiques en toute saison. Aucun pourcentage alimentaire ni série détaillée de contenus stomacaux n’a été vérifié pour ce travail. On ne reprend pas la liste alimentaire d’une autre hypolaïs jaune en changeant seulement son nom.
Comment cherche-t-elle sa nourriture ?
Pendant ses déplacements dans la végétation, on peut observer les prises de nourriture autour des feuilles et des branches. L’orientation du bec relève de la recherche ; une capture n’est notée que si l’objet ou la déglutition est assez visible. Un mouvement masqué par le couvert ne doit pas être raconté comme s’il avait été vu. La quête alimentaire et la dissimulation face au danger sont des comportements différents. Attendre silencieusement au bord d’un fourré humide peut faciliter le suivi de sa recherche naturelle. Déposer un appât vivant ou secouer les feuilles modifie tant l’aliment obtenu que l’endroit utilisé par l’oiseau.
Toutes les populations n’ont pas la tête noire
Les anciens noms anglais soulignent la noirceur de la tête. Pourtant, la notice spécialisée précise que certaines sous-espèces ont une calotte presque noire et d’autres olive comme le dos. Un caractère mis en avant dans un nom n’est pas forcément un signe diagnostique constant dans toute la géographie de l’espèce. Tête et dos doivent être vus ensemble sous la même lumière.
Davantage de mentions estivales ne signifie pas toujours migration
L’atlas régional indique que chant et parade peuvent rendre l’oiseau plus visible en été. Une hausse du nombre de mentions diffère de l’arrivée réelle de nouveaux individus. Résidence, changements locaux d’altitude et détectabilité s’évaluent ensemble. Une étiquette migratrice pour toute l’aire à partir d’un seul graphique saisonnier peut être erronée.
Un ancien nom de genre ne crée pas un autre oiseau jaune
Chloropeta natalensis est l’ancienne combinaison générique de l’actuelle Iduna natalensis. Les articles primaires de terrain et les atlas peuvent employer l’ancien nom. Leurs informations concernant le bon taxon restent utiles, mais la famille indiquée à l’époque ne se substitue pas automatiquement à la classification actuelle. Changement de genre et reconnaissance d’une autre espèce sont deux opérations différentes.
Une moyenne d’œufs n’est pas le contenu d’un nid réel
Une moyenne fractionnaire d’œufs dans une compilation de traits de vie n’est pas présentée comme le nombre réel d’œufs d’un nid.
Les deux mâles de l’étude d’Inyanga avaient les yeux brun foncé. Les mandibules supérieure et inférieure étaient décrites séparément : la première noire, la seconde entre brun et rose. Distinguer la couleur des plumes de la calotte de celle des yeux aide à interpréter correctement l’ancienne note de terrain.