Aves do mundo Estatuto UICNLC · Pouco preocupanteCategoria global da IUCN. BirdLife v10 (2025); correspondência taxonômica: AviList 2026 / IOC 15.2; verificação: 29.10.2026. O ano da lista não é a data de avaliação da espécie. Fonte e método · BirdLife OrdemPasseriformesPasseriformes FamíliaCalyptomenidaeCalyptomenidae
Bocarra-africana
Smithornis capensis
Pequena ave florestal de bico largo e plano, cauda curta e estrias castanhas e brancas. Pode expor penas dorsais brancas na exibição e produzir som mecânico pela vibração das penas alares.
Biometria
Comprimento
Macho12–14 cm
Fêmea12–14 cm
Valor comum da espécie
Comprimento da asa
Macho7,01 cm
Fêmea7,01 cm
Valor comum da espécie
Peso
Macho21–26,9 g
Fêmea17,4–27,5 g
Bocarra-africana
Distribuição descontínua em florestas e bosques densos adequados da África subsaarianaGuia de observação na distribuição natural
Procure três características em conjunto
Não decida com base num único sinalA largura vê-se melhor de frente ou por baixo; confirme com a cauda curta.
Não tem a zona peitoral arruivada marcada de congéneres semelhantes; o centro do ventre pode ser mais liso.
Penas dorsais escondidas podem expor-se na exibição. Não espere igual som e aspeto em todo o voo comum.
Comparar macho e fêmea
 FêmeaMacho
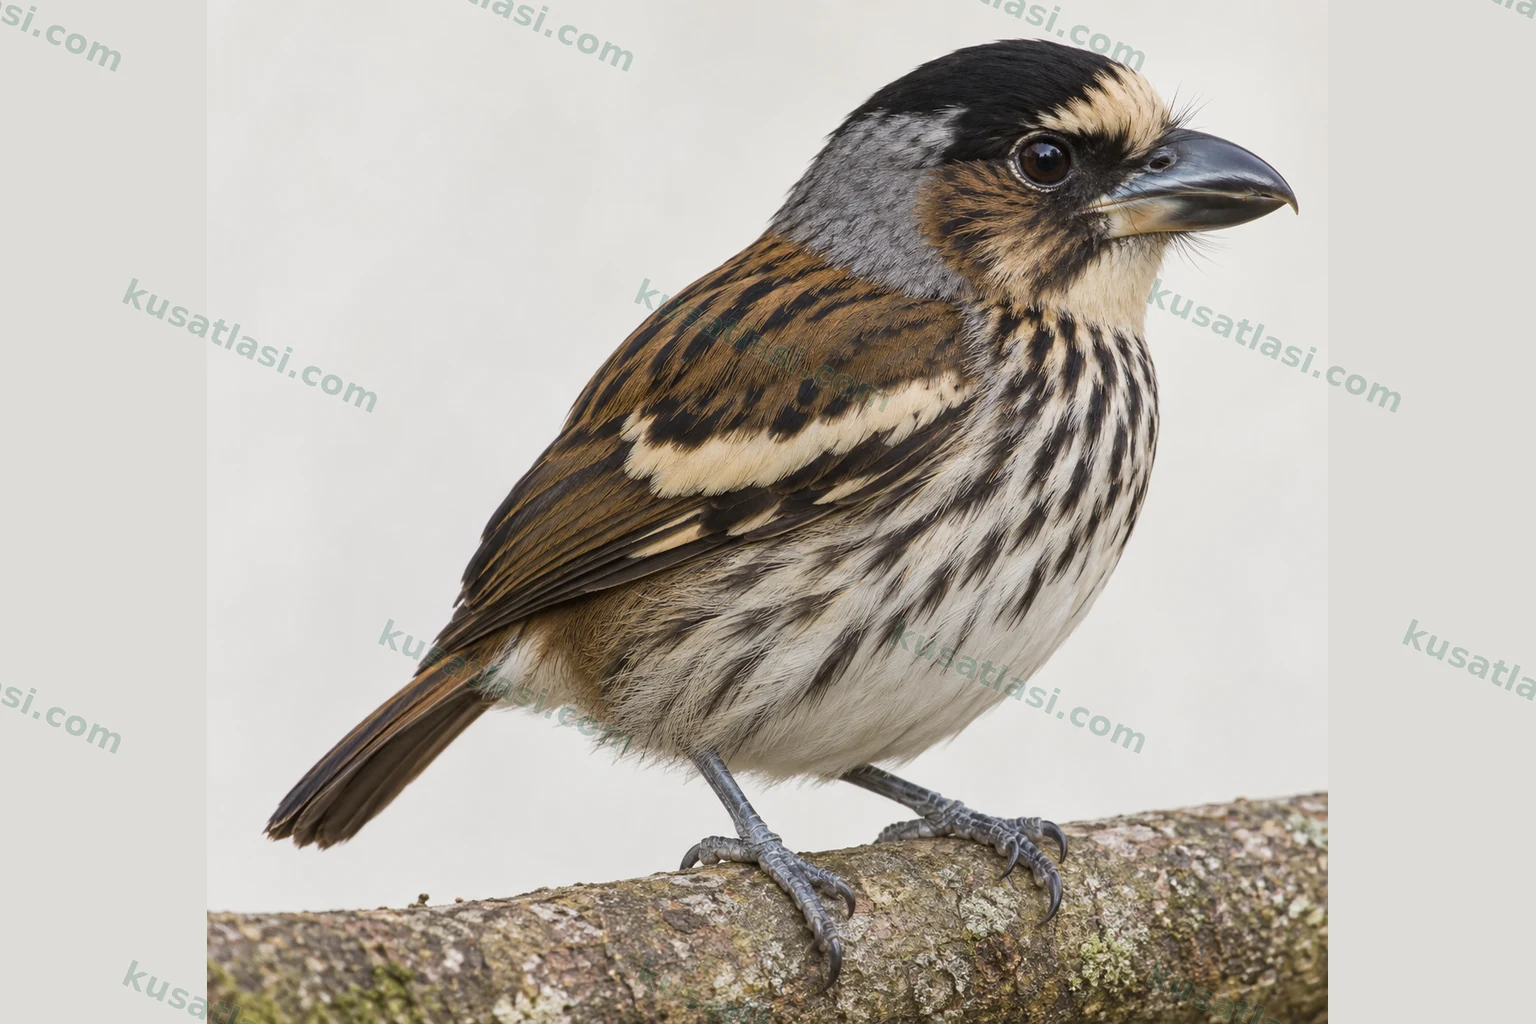
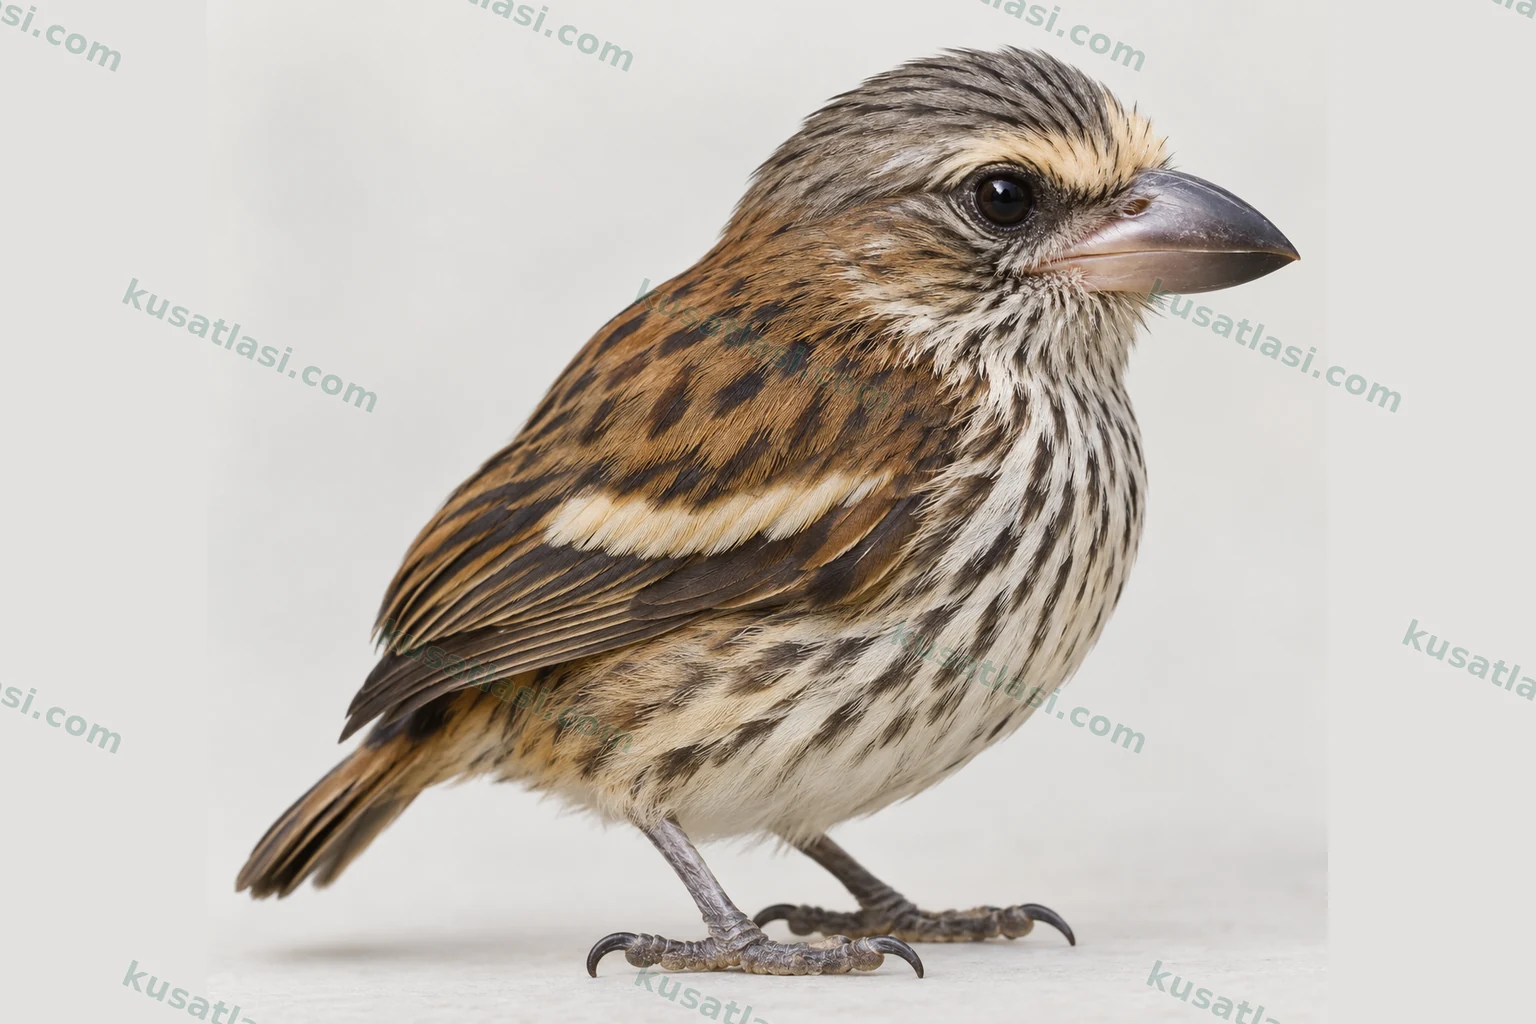
Com boa luz ajudam coroa preta masculina e feminina mais baça finamente estriada. Mantenha diferenças geográficas e de sombra; jovens podem parecer fêmeas. Escuridão ou transporte de comida não determinam sexo com certeza.
Onde procurar na sua distribuição natural?
Observe a floresta ribeirinha, o matagal denso e a cobertura arbórea de baixa altitude a partir do caminho existente. Não force a saída de uma ave imóvel no poleiro nem abra a vegetação em redor de um ninho suspenso.
É sobretudo residente na África austral. SABAP1 indica agosto–fevereiro no Zimbabwe, com concentração outubro–dezembro, e postura setembro–dezembro no KwaZulu-Natal. O som altera deteção; não é calendário comum de presença ou probabilidade de cria para África inteira.
Janeiro
Sobretudo residente; a atividade sonora pode alterar a deteção. Dentro do intervalo agosto–fevereiro de registos reprodutivos do atlas do Zimbabwe. Não é percentagem de probabilidade de presença ou migração.
Fevereiro
Sobretudo residente; a atividade sonora pode alterar a deteção. Dentro do intervalo agosto–fevereiro de registos reprodutivos do atlas do Zimbabwe. Não é percentagem de probabilidade de presença ou migração.
Março
Sobretudo residente; a atividade sonora pode alterar a deteção. Fora do principal intervalo reprodutivo desse atlas; não significa ausência de reprodução em África inteira. Não é percentagem de probabilidade de presença ou migração.
Abril
Sobretudo residente; a atividade sonora pode alterar a deteção. Fora do principal intervalo reprodutivo desse atlas; não significa ausência de reprodução em África inteira. Não é percentagem de probabilidade de presença ou migração.
Maio
Sobretudo residente; a atividade sonora pode alterar a deteção. Fora do principal intervalo reprodutivo desse atlas; não significa ausência de reprodução em África inteira. Não é percentagem de probabilidade de presença ou migração.
Junho
Sobretudo residente; a atividade sonora pode alterar a deteção. Fora do principal intervalo reprodutivo desse atlas; não significa ausência de reprodução em África inteira. Não é percentagem de probabilidade de presença ou migração.
Julho
Sobretudo residente; a atividade sonora pode alterar a deteção. Fora do principal intervalo reprodutivo desse atlas; não significa ausência de reprodução em África inteira. Não é percentagem de probabilidade de presença ou migração.
Agosto
Sobretudo residente; a atividade sonora pode alterar a deteção. Dentro do intervalo agosto–fevereiro de registos reprodutivos do atlas do Zimbabwe. Não é percentagem de probabilidade de presença ou migração.
Setembro
Sobretudo residente; a atividade sonora pode alterar a deteção. Dentro do intervalo agosto–fevereiro de registos reprodutivos do atlas do Zimbabwe. Dentro do intervalo de postura referido para KwaZulu-Natal. Não é percentagem de probabilidade de presença ou migração.
Outubro
Sobretudo residente; a atividade sonora pode alterar a deteção. Dentro do intervalo agosto–fevereiro de registos reprodutivos do atlas do Zimbabwe. Mês de concentração dos registos nesta região. Dentro do intervalo de postura referido para KwaZulu-Natal. Não é percentagem de probabilidade de presença ou migração.
Novembro
Sobretudo residente; a atividade sonora pode alterar a deteção. Dentro do intervalo agosto–fevereiro de registos reprodutivos do atlas do Zimbabwe. Mês de concentração dos registos nesta região. Dentro do intervalo de postura referido para KwaZulu-Natal. Não é percentagem de probabilidade de presença ou migração.
Dezembro
Sobretudo residente; a atividade sonora pode alterar a deteção. Dentro do intervalo agosto–fevereiro de registos reprodutivos do atlas do Zimbabwe. Mês de concentração dos registos nesta região. Dentro do intervalo de postura referido para KwaZulu-Natal. Não é percentagem de probabilidade de presença ou migração.
Ninho, ovo e incubação
Ambos os sexos podem construir o ninho oval ou em forma de bolsa que fica suspenso num ramo baixo, com entrada lateral. As descrições regionais referem um–três ovos e incubação pela fêmea durante 16–17 dias. Ambos os sexos podem alimentar as crias; as três crias de um ninho bem-sucedido de Golwe saíram com idades de 14–16 dias. Esta pequena amostra local não fixa uma duração de desenvolvimento para todas as populações nem assinala o fim dos cuidados.
O som mecânico alto de exibição vem de penas de voo que vibram no ar. Chocar asas não é mecanismo principal. Há também vocalizações verdadeiras curtas; nem toda a chamada é alar.
Não reproduza gravações para atrair aves; observe em silêncio, sobretudo perto dos ninhos.
Informações da espécie
Identificação rápida
A Bocarra-africana, Smithornis capensis, é uma ave pequena e compacta, castanha e branca, que pode passar facilmente despercebida sob uma cobertura arbórea densa. A cauda curta, o dorso e as partes inferiores estriados e o bico cuja largura se torna especialmente evidente visto de baixo devem ser avaliados em conjunto. O centro da parte inferior do corpo mantém-se mais liso e claro, enquanto se destacam as estrias escuras do peito e dos flancos. A permanência imóvel num ramo durante muito tempo pode dar a impressão de que a ave não está ali; a identificação não deve limitar-se à procura de aves em movimento.
Durante a exibição, pode descrever um círculo apertado e regressar ao poleiro. As penas brancas do dorso, em grande parte ocultas na postura normal, podem erguer-se e produzir um clarão pálido nesse voo. Contudo, um clarão branco ou um som mecânico não confirma por si só a espécie sem que a ave seja vista. Outras espécies semelhantes do mesmo género também executam voos de exibição. A comparação mais útil verifica no mesmo indivíduo o bico largo, as proporções compactas, as estrias do peito e a presença ou ausência de uma área peitoral arruivada.
Aspeto geral e postura
O dorso e a região das asas têm tons castanhos quentes, com estrias escuras no dorso. As pontas creme claro ou amarelo-acastanhadas de algumas penas das asas podem sugerir uma barra pálida. As partes inferiores são sobretudo esbranquiçadas; os lados do peito e os flancos podem apresentar tons claros mais quentes e estrias escuras. Um centro do ventre mais liso não significa que toda a parte inferior esteja sem marcas. As sombras das folhas não devem ser confundidas com estrias reais; o desenho volta a ser verificado quando a ave muda de ângulo.
A largura do bico pode não ser totalmente evidente numa vista lateral. Uma vista de baixo ou de um ângulo frontal adequado revela melhor a sua forma larga e achatada. Não é necessário espantar a ave para obter esse ângulo; é preferível esperar um movimento natural. A cauda curta e as proporções compactas da cabeça e do corpo ajudam a distingui-la de muitos insetívoros esguios e alongados. O eriçamento das penas, o ângulo e um ramo interposto podem alterar essas proporções; a cauda visível numa fotografia não constitui, por si só, uma medida.
As formas geográficas podem diferir no tom da plumagem. Em vez de atribuir uma subespécie com certeza a partir de uma única condição de luz, registam-se em conjunto o local da observação e o desenho realmente visto.
Machos, fêmeas e aves jovens
A descrição especializada atual apresenta o macho adulto com coroa preta, testa amarelo-acastanhada clara e nuca mais cinzenta. A fêmea é semelhante, mas a coroa pode ser de cinzento mais baço, com finas estrias escuras. Uma coroa mais clara na fêmea é referida especialmente em algumas formas geográficas. Estas diferenças exigem boa luz e bom ângulo. Nem toda a ave cuja coroa parece preta à sombra das folhas é macho; a coroa do macho também pode parecer mais clara sob luz forte.
Os jovens podem assemelhar-se em geral à fêmea, com tons quentes claros da testa e estrias da coroa menos marcados. Não se trata de uma chave pormenorizada para calcular a idade em dias. Penas desordenadas ou um breve período escondido depois de sair do ninho não permitem, por si sós, estabelecer uma idade exata. As medidas de crescimento de um estudo científico de crias também não são comprimentos adultos aplicáveis a todas as aves fotografadas. Se a alimentação do jovem por um progenitor for efetivamente observada, esse comportamento pode apoiar a interpretação da plumagem; a simples presença de outra ave nas proximidades não demonstra parentesco.
Os estudos reprodutores distinguem a incubação da fêmea da participação dos dois sexos na alimentação das crias. Por isso, não se identifica como macho toda a ave que transporta alimento com base apenas nessa ação. O aspeto da coroa, o ângulo e o comportamento do indivíduo acompanhado são avaliados em conjunto. Quando não é possível atribuir o sexo com segurança, registar um adulto é mais útil do que transformar forçosamente a incerteza em macho ou fêmea.
Aspeto em voo
O voo de exibição pode incluir uma curva apertada em redor de um ramo, seguida do regresso ao poleiro. As penas brancas do dorso expostas nesse momento podem produzir um clarão breve na floresta escura. Este aspeto não é o mesmo de um voo normal de procura de alimento. A ausência do som de exibição ou da mesma área branca durante uma deslocação quotidiana não exclui a espécie. A cauda curta, o bico largo e o peito estriado observados no poleiro completam a observação em voo.
A investigação experimental demonstrou que o som de exibição provém de determinadas penas de voo que vibram com a corrente de ar. Este mecanismo difere da explicação simplificada de asas a baterem uma contra a outra. Os movimentos das asas nessa exibição não são convertidos em velocidade de voo normal ou de migração. O movimento da ponta da asa medido no estudo não significa que o corpo inteiro avance à mesma velocidade.
Voz e comportamento
A forte vibração mecânica da exibição facilita detetar a espécie. Uma comparação escrita como «krrrr» aproxima a estrutura do som, mas não reproduz completamente o ritmo, a intensidade e a altura do som natural. A produção desse som pelas asas não significa que todos os chamamentos da ave tenham origem nas asas. Os investigadores também descreveram vocalizações verdadeiras mais curtas, audíveis a pequena distância antes da exibição. Estes dois tipos de som não devem ser confundidos na explicação.
Quando não está em exibição, a ave pode permanecer imóvel na vegetação e passar facilmente despercebida. O atlas da África austral refere que o maior número de registos na primavera e no início do verão pode estar relacionado com maior atividade sonora. Ouvi-la mais não demonstra necessariamente que nesse mês cheguem mais aves de fora. Para observar uma exibição natural não é preciso reproduzir gravações, provocar a ave ou cortar ramos. Deixar um indivíduo silencioso no poleiro proporciona uma vista mais longa para o identificar sem perturbar a utilização do local.
Espécies semelhantes
1. Smithornis rufolateralis pode confundir-se pela silhueta compacta e pelo comportamento de exibição semelhante. A comparação de Cornell indica a área arruivada do peito como um dos sinais úteis para separar as duas espécies. A Bocarra-africana não tem essa área peitoral arruivada bem definida; verificam-se em conjunto as estrias escuras sobre fundo claro e o bico largo. Como os dois congéneres podem produzir sons de exibição com as asas, o som mecânico, por si só, não determina a espécie.
2. Smithornis sharpei é outro congénere próximo a comparar. Cornell também menciona a ausência de aspeto arruivado no peito ao distinguir dele a Bocarra-africana. A coroa mais cinzenta de uma fêmea de Bocarra-africana não basta para a identificar como Smithornis sharpei. Peito, asas e bico devem ser vistos em conjunto; uma observação insuficiente não recebe um nome de espécie apenas porque uma cor coincide com esse nome.
Distribuição mundial
A Bocarra-africana ocorre de forma descontínua nas florestas e nos bosques densos adequados da África subsaariana. As áreas de Serra Leoa, Libéria e Gana a oeste, os Camarões, o Gabão e a bacia do Congo no centro, e o Uganda, Quénia, Tanzânia, Zâmbia, Malawi, Moçambique e outros bosques favoráveis a leste e a sul constituem o contexto regional amplo. Também são descritas formas geográficas em Angola e no Zimbabué. Isto não significa que todos os terrenos intermédios estejam continuamente ocupados.
Na região austral, são importantes os locais adequados de cobertura densa do Limpopo e de KwaZulu-Natal e o leste de Eswatini. Os registos do Zambeze e do nordeste da Namíbia devem ser interpretados com o caráter local e fragmentado dos sítios. A descrição nos atlas como ave fácil de passar despercebida mostra que poucos registos nem sempre significam poucas aves. Em contrapartida, a falta de registos também não permite criar uma vasta área de residência comprovada. As células de previsão e de observação do mapa não são o mesmo tipo de prova que uma área de reprodução confirmada.
Situação na área natural
A avaliação global de 2024 atribui a categoria Pouco Preocupante, LC. Para a região de avaliação da África do Sul, Lesoto e Eswatini, a categoria de 2025 é Vulnerável, VU. A categoria mundial e a situação de uma região mais pequena podem diferir. A perda de sub-bosque denso e a fragmentação florestal são especialmente importantes na avaliação regional. Uma fonte antiga que não reconhecesse ameaça global não torna insignificante a perda local de habitat.
A descrição regional atual distingue a contração de área estimada por modelos, a alteração do habitat e a probabilidade de registo. Uma percentagem de redução de área modelada não é apresentada como perda de indivíduos contados diretamente. A continuidade dos registos em áreas protegidas também não demonstra que todos os lugares não protegidos se encontrem na mesma situação. Para afirmar que a população está segura, devem considerar-se a condição da cobertura e estudos repetidos, em vez de uma única observação bem-sucedida.
Migração
As descrições especializadas e os atlas da África austral tratam a espécie como essencialmente residente; não está verificada uma rota intercontinental regular. Ser mais ouvida ou registada em determinada estação não constitui automaticamente prova de migração. As exibições reprodutoras podem tornar mais detetável uma ave que passa despercebida quando está silenciosa. Por isso, presença e probabilidade de deteção não têm o mesmo significado no calendário.
Também não se supõe que cada indivíduo permaneça todo o ano no mesmo ramo ou no mesmo pequeno fragmento de floresta. Neste trabalho não foram verificadas rotas individuais precisas entre populações; não se ligam países no mapa com linhas inventadas. Os registos reprodutores do Zimbabué no atlas austral e os meses de postura de KwaZulu-Natal mantêm os respetivos contextos regionais. O intervalo de meses de um país não é aplicado sem alterações a todas as populações da África ocidental e oriental.
Habitat de reprodução
A Bocarra-africana está associada a matos densos, florestas ribeirinhas e sub-bosque. Também pode utilizar o estrato médio de florestas perenifólias de baixa altitude. A presença de árvores altas, por si só, não explica a adequação do lugar; a continuidade e a estrutura da cobertura utilizada são igualmente importantes. A avaliação regional atual considera a degradação do sub-bosque e o isolamento dos fragmentos florestais. Uma única árvore grande num parque aberto não equivale ao habitat de um bosque natural denso.
Local do ninho
Ambos os sexos podem construir o ninho oval ou em forma de bolsa que fica suspenso de um ramo baixo. A entrada é lateral; os materiais incluem casca, folhas secas, raminhos, ervas e pequenas raízes. Fragmentos de teia de aranha também podem manter a estrutura unida. A descrição regional oferece exemplos a cerca de 1,5–3 m do solo, sem impor essa altura a todos os ninhos. O ninho pode encontrar-se junto de um ribeiro ou de uma faixa húmida, mas não se afirma que fique obrigatoriamente sobre água corrente.
A descrição regional refere tipicamente um–três ovos e incubação da fêmea durante cerca de 16–17 dias. Um pequeno estudo de campo no nordeste da África do Sul observou a incubação da fêmea e a alimentação das crias pelos dois sexos. As três crias de um ninho bem-sucedido, nascidas em dias diferentes, saíram com idades de 14–16 dias (observação de Golwe em 2007; não é uma duração fixa para todas as populações). A incubação e o desenvolvimento no ninho são intervalos distintos e não devem ser trocados.
Utilização diária do espaço
A ave pode permanecer imóvel no poleiro durante muito tempo, seguindo-se procura de alimento dentro da cobertura ou voos curtos. Pode ser especialmente difícil detetá-la em matos ribeirinhos densos. Observar os movimentos naturais a partir de um caminho existente permite uma identificação mais segura do que tentar obrigá-la a sair. Se for encontrado um ninho suspenso, não se cortam plantas em redor para o expor, não se aproxima ninguém da entrada e não se tocam as crias. Um ninho que parece vazio à distância não está necessariamente vazio; uma fêmea silenciosa pode continuar lá dentro.
O que come?
As descrições especializadas indicam uma alimentação composta sobretudo por pequenos invertebrados. Insetos, gafanhotos, lagartas e aranhas são alguns dos exemplos referidos. O bico largo não significa dependência de um único grupo de presas. Não se afirma que a espécie coma apenas insetos voadores nem apenas animais do solo. As listas regionais não representam a dieta completa de cada população africana; as presas disponíveis podem mudar com a cobertura utilizada e a estação.
O estudo sul-africano das crias observou o transporte de presas pequenas, maioritariamente de corpo mole. Lagartas, pequenas borboletas, traças e aranhas pertencem ao contexto dessa observação. Esses registos não mostram que todos os adultos escolham só esses alimentos durante todo o ano nem que existam percentagens fixas de presas em todos os ninhos. Quando não é possível distinguir um pequeno objeto no bico, regista-se a forma geral da presa em vez de lhe atribuir uma espécie exata de inseto.
Como caça?
A descrição regional especializada refere alimentação no solo, entre árvores e, por vezes, em voo. Podem observar-se movimentos em direção à presa a partir das imediações de um poleiro baixo, deslocações dentro da vegetação e o regresso ao poleiro. O voo circular de exibição não é o mesmo comportamento de um voo de captura. Sem ver realmente uma presa transportada, não se regista cada breve curva como caça. O estrato vegetal e o local de captura podem ser anotados separadamente.
A contribuição do adulto que leva alimento à cria é avaliada para o intervalo efetivamente observado. O maior transporte de comida pelo macho num estudo de campo não significa que a fêmea nunca alimente. Cuidados predominantemente masculinos num ninho também não se convertem numa percentagem invariável de toda a espécie. Retirar ramos e folhas para ver melhor a entrada pode perturbar o ritmo natural das entregas; o número de presas não vistas não deve ser registado como zero presas.
O som de exibição vem das penas das asas
Um estudo experimental publicado em 2016 examinou a origem do som mecânico marcante do voo de exibição da Bocarra-africana. Imagens de alta velocidade, som sincronizado e ensaios em túnel de vento apoiam a vibração de determinadas penas de voo pela corrente de ar. O bater das asas uma contra a outra não é o mecanismo principal mostrado pelos resultados. Explicar como o som é produzido e por que razão esta comunicação evoluiu são perguntas diferentes; as explicações propostas para a segunda não são apresentadas como conclusões definitivas.
As penas brancas não aparecem em todas as posturas
As penas brancas do dorso expostas durante a exibição podem continuar escondidas quando a ave está normalmente pousada. O relato de campo do autor da investigação também menciona esse clarão branco breve. Não ver uma grande área branca numa ave no ramo não justifica escolher imediatamente outra espécie. Comparar o mesmo indivíduo pousado e em exibição é mais seguro do que esperar uma aparência idêntica ao confrontar fotografias independentes.
Poucos ninhos não dão uma taxa para toda a espécie
Dos quatro ninhos ativos acompanhados em Golwe em 2007, um produziu com sucesso três crias. O estudo oferece registos valiosos de perdas de ninhos e cuidados, mas uma amostra pequena e local não representa o sucesso reprodutor de toda a África. Na mesma investigação, a fêmea incubou e os dois sexos participaram na alimentação das crias. Um adulto transportar mais presas não significa que o outro não tenha papel nos cuidados.
Frequência de registos não é aumento numérico
A ave pode permanecer imóvel muito tempo sob a cobertura florestal, mas é mais fácil de detetar durante a exibição. A explicação dos atlas para mais registos na primavera e no início do verão também considera a atividade sonora acrescida. Esse aumento não significa diretamente migração nem mais casais reprodutores. A categoria global LC e a categoria VU da região austral referem-se igualmente a escalas diferentes; uma ave vista num lugar não determina o estado de conservação de toda a região.