Aves do mundo Estatuto UICNLC · Pouco preocupanteCategoria global da IUCN. BirdLife v10 (2025); correspondência taxonômica: AviList 2026 / IOC 15.2; verificação: 29.10.2026. O ano da lista não é a data de avaliação da espécie. Fonte e método · BirdLife OrdemPasseriformesPasseriformes FamíliaMuscicapidaeMuscicapidae
Chasco-afroalpino
Pinarochroa sordida
É uma pequena ave de cauda curta e patas compridas das pradarias de alta montanha da África Oriental. Aspeto castanho simples, postura direita e branco externo da cauda em voo avaliam-se juntos.
Biometria
Comprimento
Macho14–15 cm
Fêmea14–15 cm
Valor comum da espécie
Comprimento da asa
Macho7,47 cm
Fêmea7,47 cm
Valor comum da espécie
Peso
Macho18–19 g
Fêmea20–23 g
Chasco-afroalpino
Terras altas da Etiópia, Uganda, Quénia e norte da TanzâniaGuia de observação na distribuição natural
Procure três características em conjunto
Não decida com base num único sinalDestacam-se em postura direita; a cauda fechada pode esconder zonas brancas.
Podem formar um T invertido com centro e faixa terminal escuros; outros chascos têm padrões parecidos.
Procura-se em movimentos breves entre pradaria rochosa, plantas baixas e chão alimentar.
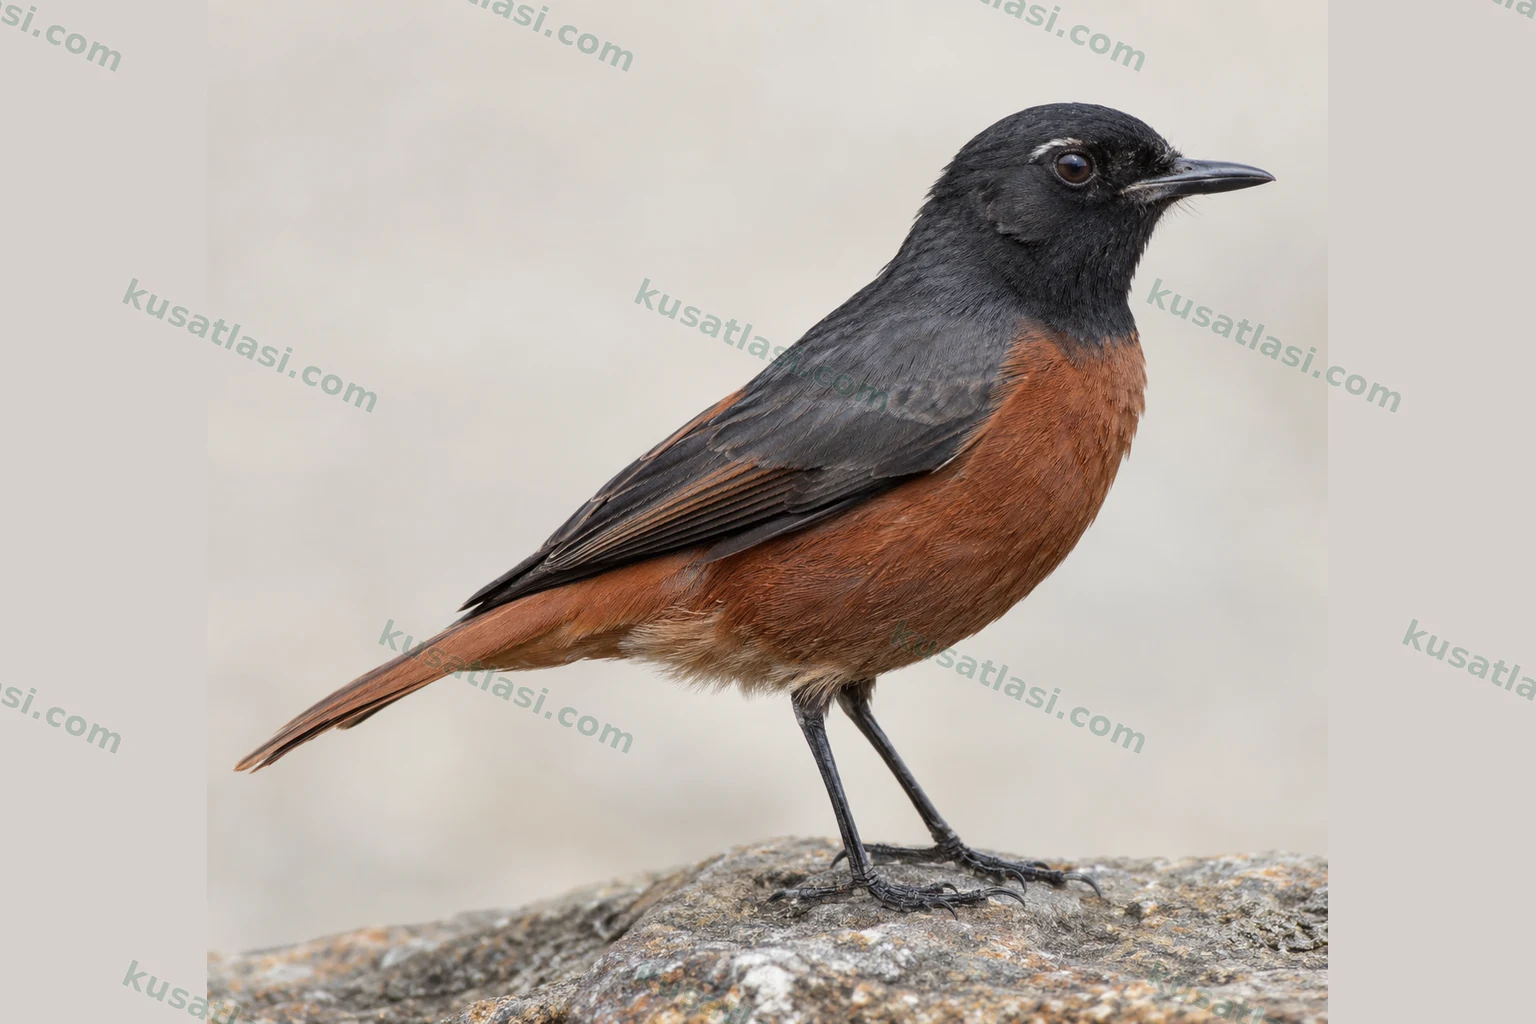
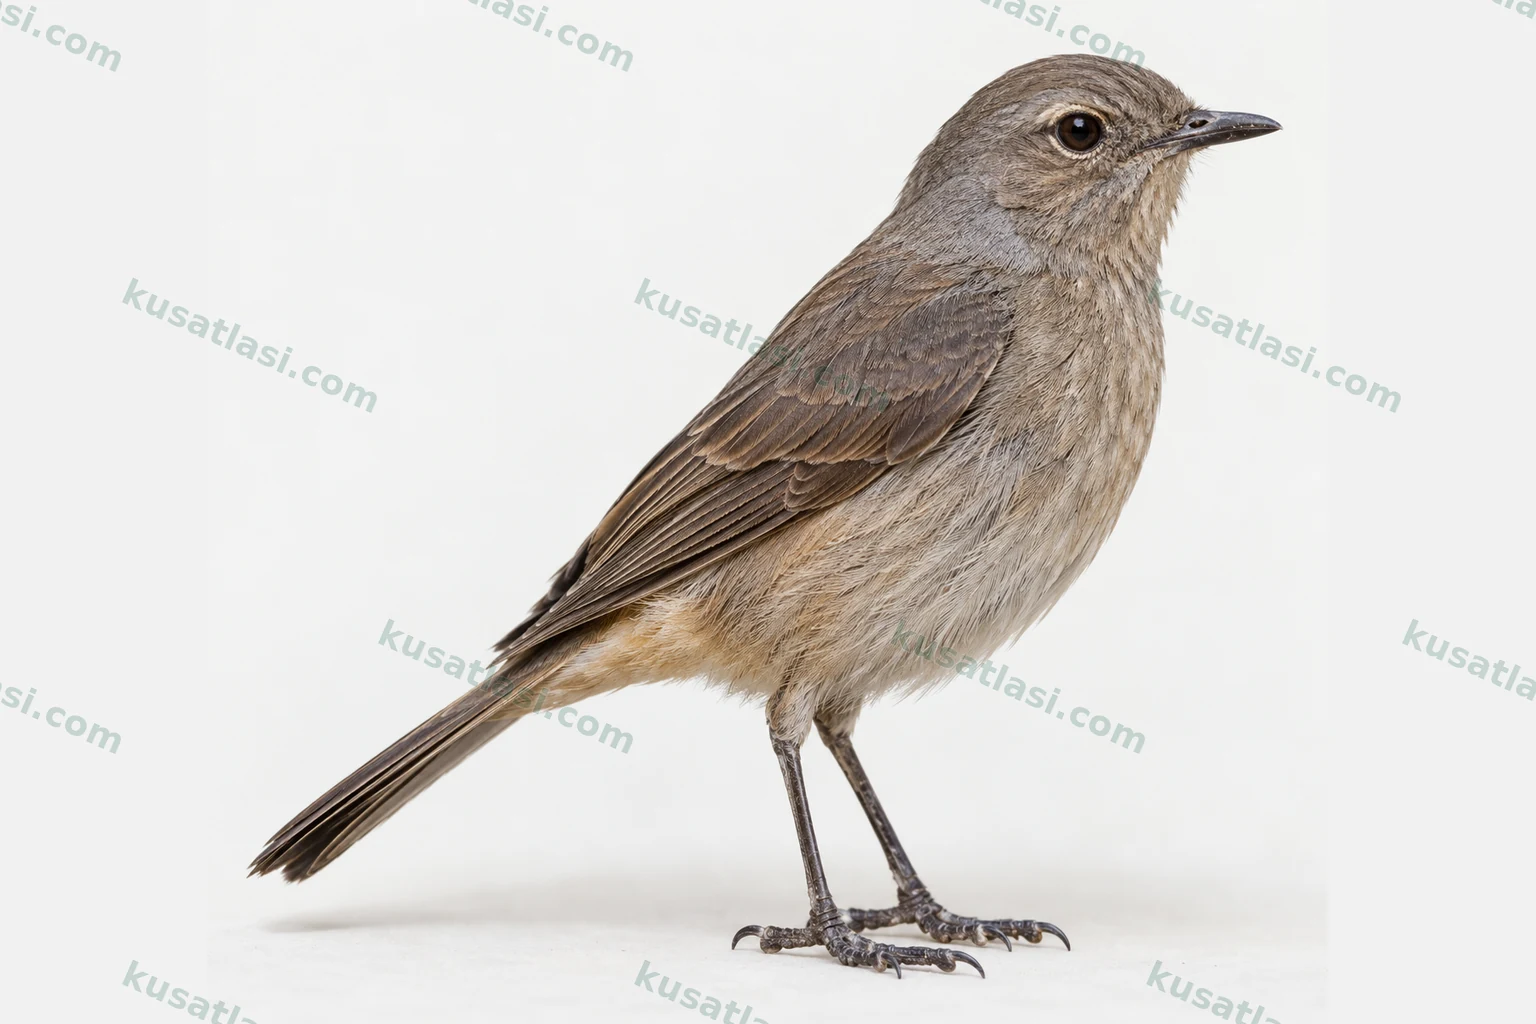
Comparar macho e fêmea
 FêmeaMacho
Os adultos dos dois sexos não se distinguem com segurança pelo aspeto. Diferenças simples de tom não indicam sexo. Os jovens assemelham-se globalmente aos adultos; se não se veem desenvolvimento das penas e comportamento, a idade fica incerta.
Onde procurar na sua distribuição natural?
De um trilho existente, observe pedras e plantas baixas das pradarias montanas abertas. Espere que a ave suba sozinha a um poiso; não a alimente nem abra cobertura para procurar ninhos.
É sobretudo residente. As fontes revistas não fornecem períodos mensais de postura verificados para toda a área nem uma rota migratória regular. O número de observações não se transforma em probabilidade de reprodução.
Todos os meses: sobretudo residente. Não se encontrou calendário regional de reprodução verificado para este mês.
Janeiro
Fevereiro
Março
Abril
Maio
Junho
Julho
Agosto
Setembro
Outubro
Novembro
Dezembro
Ninho, ovo e incubação
A descrição especializada dá um ninho em taça de fibras vegetais, raminhos e materiais externos de suporte, forrado com materiais suaves. A compilação de história vital refere três ovos e a descrição especializada casos de três–quatro ovos. Não se encontraram duração fiável de incubação ou idade do primeiro voo próprias da espécie. Não se levantam pedras nem se abre a vegetação para procurar ninhos, nem se seguem de perto aves com alimento.
O alarme distingue-se do assobio mecânico das batidas rápidas ao levantar voo. O ensaio de Bale estudou os dois sons separadamente. Contexto e imagem avaliam-se juntos; não se conclui que seja um vigilante que protege regularmente outros animais.
Não reproduza gravações para atrair aves; observe em silêncio, sobretudo perto dos ninhos.
Informações da espécie
Identificação rápida
O Chasco-afroalpino, Pinarochroa sordida, é uma pequena ave arredondada de cauda curta das pradarias de alta montanha da África Oriental. Parece inicialmente castanho simples ou cinzento-acastanhado. A melhor combinação junta patas compridas realçadas pela postura direita, partes inferiores claras e penas externas brancas da cauda reveladas em voo. O centro escuro e a faixa terminal da cauda aberta lembram um T invertido. O padrão não basta sozinho: outros chascos podem mostrar algo semelhante.
O nome inglês Moorland Chat corresponde ao científico aceite Pinarochroa sordida. Cercomela sordida, usado em publicações antigas, é a anterior colocação genérica da mesma ave. O termo turco bülbül do nome não a põe no género dos verdadeiros rouxinóis. A genética mostrou que chascos de aspeto parecido nem sempre são os parentes mais próximos. Hoje é a única espécie do seu género; a cor simples não é um sinal de campo dessa posição evolutiva distinta.
Aspeto geral e postura
Cabeça e corpo não contrastam fortemente. O dorso é geralmente castanho; as penas de voo escuras podem ter margens finas mais claras. Garganta, peito e ventre são mais claros do que as partes superiores. Em alguns indivíduos o tom inferior aproxima-se do cinzento, noutros do castanho pálido. As penas entre olho e bico e as que cobrem o ouvido podem parecer mais escuras, enquadrando a face. O anel ocular claro é estreito e a sua visibilidade depende da luz; não é uma sobrancelha branca marcada.
Os olhos são castanho-escuros. Bico e patas são escuros, descritos de cinzento-acastanhado a quase preto. Ao endireitar-se numa pedra parece de patas longas; agachado, de corpo mais cheio. A postura muda o tamanho aparente do mesmo indivíduo. Cauda curta, asa fechada e partes inferiores claras juntas são mais fiáveis do que cor isolada. O branco externo pode ficar todo escondido na cauda fechada.
Machos, fêmeas e jovens
Os adultos dos dois sexos não se separam com segurança pelo aspeto. Um estudo de Bale fotografou um adulto em pormenor sem determinar o sexo; os investigadores afirmam a ausência de diferença sexual visível. Não se espera uma diferença de cor obrigatória entre pranchas masculina e feminina. Um indivíduo mais claro, escuro ou direito não revela assim o sexo. Subespécie, luz e estado da plumagem também influenciam o aspeto.
Os jovens assemelham-se globalmente aos adultos. O tom castanho não determina a idade; desenvolvimento das penas, asas, cauda e eventual relação parental avaliam-se juntos. Não se exige a todos um padrão juvenil não verificado. Uma ave pequena a voar sozinha também não demonstra alimentação plenamente independente. Sem detalhe à distância, deixar a idade incerta é melhor do que uma certeza falsa.
Também se registaram indivíduos muito claros, diferentes do aspeto castanho habitual.
Aspeto em voo
Os movimentos quotidianos são sobretudo voos curtos e saltos perto do solo. Pode descer de uma pedra, planta baixa ou haste floral e voltar a um poiso. Em voo destacam-se os lados claros da cauda curta. Localizar centro e faixa terminal escuros pode ser mais fácil do que perceber a cor geral durante as batidas rápidas. Depois de ver branco caudal, esperar a aterragem permite outra verificação de corpo e patas.
O trabalho de Bale registou também um som assobiado produzido pelas batidas rápidas no arranque. Este som mecânico difere do alarme produzido pelo órgão vocal. Tratá-los como o mesmo tipo de voz muda a interpretação do comportamento. Ser residente também não impede voos maiores. Não se deduzem rotas migratórias, distâncias ou limites fixos de dispersão de movimentos diários curtos.
Voz e comportamento
Procura perto do solo com saltos pequenos e sobe depois a um ponto baixo para observar. Há indivíduos que se aproximam de uma pessoa quieta, sem isso justificar alimentá-los ou não sair do seu caminho. As idas breves entre plantas montanas condizem com recolher alimento no chão. Um alarme pode indicar que a ave foi notada; observam-se também os movimentos em redor para perceber a causa. Uma reação ou falta dela a outra espécie não se generaliza de um caso.
A ligação às ratazanas-toupeira-gigantes é elucidativa. A ave pode aproveitar invertebrados na terra e restos vegetais expulsos das tocas. Propôs-se uma parceria de alarme benéfica para ambas. Porém, no ensaio de reprodução de sons de Bale, os roedores reagiram pouco ao alarme da ave e mais à voz de outro roedor. Isso não confirma um vigilante habitual que os protege. A oportunidade alimentar observada e a hipótese de benefício mútuo mantêm-se distintas.
Espécies semelhantes
Oenanthe familiaris tem aspeto castanho simples parecido, mas uropígio e zonas claras da cauda arruivados alaranjados. As penas externas de Pinarochroa sordida são brancas. Se a cor não se vê bem, examinam-se corpo redondo, cauda curta e postura. O brilho de um instante de voo pode não separar branco e arruivado com segurança.
Oenanthe oenanthe pode confundir pelo uropígio branco e T caudal escuro invertido. As partes superiores cinzentas, face preta e asas pretas mais marcadas do macho adulto ajudam; fêmeas e jovens têm menor contraste. Não basta a cauda: procuram-se corpo redondo de cauda curta e face simples de Pinarochroa sordida. Estar numa pradaria de montanha não distingue sozinho as duas aves.
Distribuição mundial
Pinarochroa sordida liga-se às terras altas do leste e nordeste africanos. A área natural inclui montanhas da Etiópia, Uganda, Quénia e norte da Tanzânia, não toda a superfície desses quatro países. Pradarias montanas e espaços abertos altos diferem das planícies baixas. Bale, montanhas quenianas e relevos do norte tanzaniano albergam formas regionais. Fronteiras nacionais não delimitam o habitat.
A síntese taxonómica atual reconhece quatro subespécies: sordida na Etiópia, ernesti no Uganda e Quénia, olimotiensis nos planaltos de crateras do norte da Tanzânia e hypospodia no Kilimanjaro. Uma foto etíope não representa necessariamente o tom de toda a espécie. Cercomela foi usado para a mesma ave; um nome genérico antigo não transforma um registo noutra espécie. Confirma-se a correspondência taxonómica.
Situação na área natural
Pode ser localmente frequente em espaços abertos adequados de alta montanha. As observações de Bale descrevem encostas rochosas de pradaria e aves a alimentar-se entre grandes hastes florais. O guia de habitats do parque também a inclui entre aves das alturas. Isso apoia presença local, não densidade igual em cada ponto da cordilheira. A ausência de registos de uma região pouco visitada também não prova ausência real.
Deslocações migratórias
É sobretudo residente; veem-se com frequência voos breves entre locais alimentares e movimentos baixos. Não se desenha migração sazonal longa ou rota por países porque não foi verificada. Residência não significa toda a vida de cada indivíduo na mesma pedra ou vale. Separam-se movimento local e migração distante. Esforço e acesso afetam os totais mensais de registos; mais observações não provam diretamente migração ou reprodução nesse mês.
Ambiente de reprodução
O habitat principal são os prados abertos e as pradarias com arbustos de alta montanha. Rochas, vegetação curta, setores húmidos e terrenos cultivados vizinhos podem usar-se conjuntamente. Importam aberturas perto ou acima do limite arbóreo, mas a altitude só não torna todo o lugar adequado. O estudo de Bale decorreu a cerca de 3.500 m: altura do local investigado, não limite inferior ou superior fixo para todos os indivíduos. Solo, vegetação e alimento avaliam-se juntos.
Local do ninho
A reprodução está menos documentada do que aspeto e alimentação. A descrição especializada dá um ninho em taça de raminhos e fibras vegetais com musgo e materiais semelhantes por fora; pode revestir-se de pelos suaves e penas. A compilação de história vital com geralmente três ovos não se troca pela descrição com casos de três–quatro ovos. Não se encontrou duração fiável de incubação ou idade específica do primeiro voo. Não se preenche com tempos de parentes. Não se levantam pedras, abrem plantas ou seguem de perto aves com comida para procurar ninhos.
Uso quotidiano do espaço
São evidentes os trajetos curtos entre poisos baixos e chão alimentar. Pedra, pequeno arbusto ou grande haste floral podem servir de observatório. O indivíduo acompanhado em outubro de 2022 em Bale alimentava-se entre Kniphofia e perto do chão numa encosta rochosa; um caso não prova dependência exclusiva da planta. Os montes de terra dos roedores podem oferecer alimento. Espera-se a aparição natural a partir do trilho. Parecer confiante não justifica pisar vegetação sensível nem fornecer comida.
O que come?
Os pequenos invertebrados são importantes. A recolha no chão e perto de plantas baixas condiz com os movimentos diários das pradarias montanas abertas. Em Bale registou-se consumo de invertebrados na terra e restos vegetais expulsos pelas ratazanas-toupeira-gigantes. A ave aproveita a oportunidade; não se afirma que cace o roedor ou partilhe comida com ele. O estudo também não mostrou que todo o alimento viesse desses montes.
A relação floral foi investigada. Os trabalhos de Martin Burd sobre Lobelia deckenii mostraram procura de néctar e contribuição para polinizar. Isso não torna a ave exclusivamente nectarívora. Recolha de invertebrados e aproveitamento de flores são partes diferentes da dieta. Visitas a uma planta montana concreta não fixam as mesmas proporções em toda a área; não se extraem percentagens para a espécie inteira.
Como encontra alimento?
Avança no chão com pequenos saltos ou recolhe perto de um poiso baixo. Seguir trajetos entre pedra e base vegetal ajuda a perceber onde olha e de que superfície toma comida. Terra, margem de restos vegetais e hastes florais são locais distintos. Se um pequeno objeto no bico não se distingue de longe, não se fixa família de inseto ou tamanho certo de presa.
Nos ensaios com Lobelia, aumentar a recompensa floral não afetou todas as aves da mesma forma. Quando Nectarinia johnstoni defendeu mais as flores, diminuíram as visitas de Pinarochroa sordida. O ensaio local mostra que interações com outras aves, além da comida, podem influenciar o uso floral. Não é preciso juntar água açucarada ou atrair com comida humana: observa-se de longe o comportamento natural.
Aspeto simples e posição evolutiva distinta
A espécie foi antes colocada em Cercomela com várias aves semelhantes. A investigação genética de Outlaw, Voelker e Bowie mostrou que o grupo não era um único ramo próximo; Pinarochroa sordida separou-se claramente. Isso explica nomes genéricos antigos e atuais lado a lado. A proposta não significa mudança súbita do aspeto nem que observações antigas fossem outra espécie.
Nem toda a visita floral tem o mesmo resultado
Os estudos de Lobelia deckenii mediram o contributo na polinização, examinando frequência de visitas, procuras por visita e sementes produzidas. Mais comida não aumentou igualmente todos os visitantes. A defesa floral de outra ave pôde reduzir o acesso. Não demonstra um polinizador único ou principal em toda a parte, mas uma relação medida com uma planta montana específica.
O que ensina um indivíduo muito branco
O adulto observado em Bale em outubro de 2022 tinha a maioria das penas brancas e olhos castanho-escuros normais; algumas penas das asas e cauda continuavam parcialmente escuras. Os autores consideraram possível um aclaramento progressivo e pediram acompanhamento das mudas para esclarecer a causa. Um indivíduo invulgar não criou novo padrão sexual, subespécie ou diagnóstico de doença de toda a população. Penas brancas não significam diretamente albinismo. Data e estado das penas com a foto tornam estas observações mais úteis.
Oportunidade alimentar e parceria de alarme diferem
Observou-se a oportunidade alimentar dos detritos retirados pelo roedor. Já a ideia de aviso regular pela ave não teve apoio forte no ensaio. Os roedores responderam pouco ao alarme da ave e mais à voz de outro roedor. Dois seres podem beneficiar de partilhar um local, mas cada aspeto exige teste separado. Descrever a presença conjunta como proteção mútua ultrapassa a observação.