Oiseaux du monde Statut UICNSelon le taxon de la sourceUICN mondiale. BirdLife v10 (2025) ; correspondance taxonomique AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L’année de liste n’est pas la date d’évaluation de l’espèce. Évaluation UICN liée : Porphyrio porphyrio — Purple Swamphen : LC · Préoccupation mineure. Ces catégories appartiennent aux taxons sources nommés. Leur correspondance exacte avec le périmètre de cette page n’est pas vérifiée ; elles ne sont donc pas attribuées comme catégorie indépendante de l’espèce. Source et méthode OrdreGruiformesGruiformes FamilleRallidaeRallidae
Talève d’Afrique
Porphyrio madagascariensis
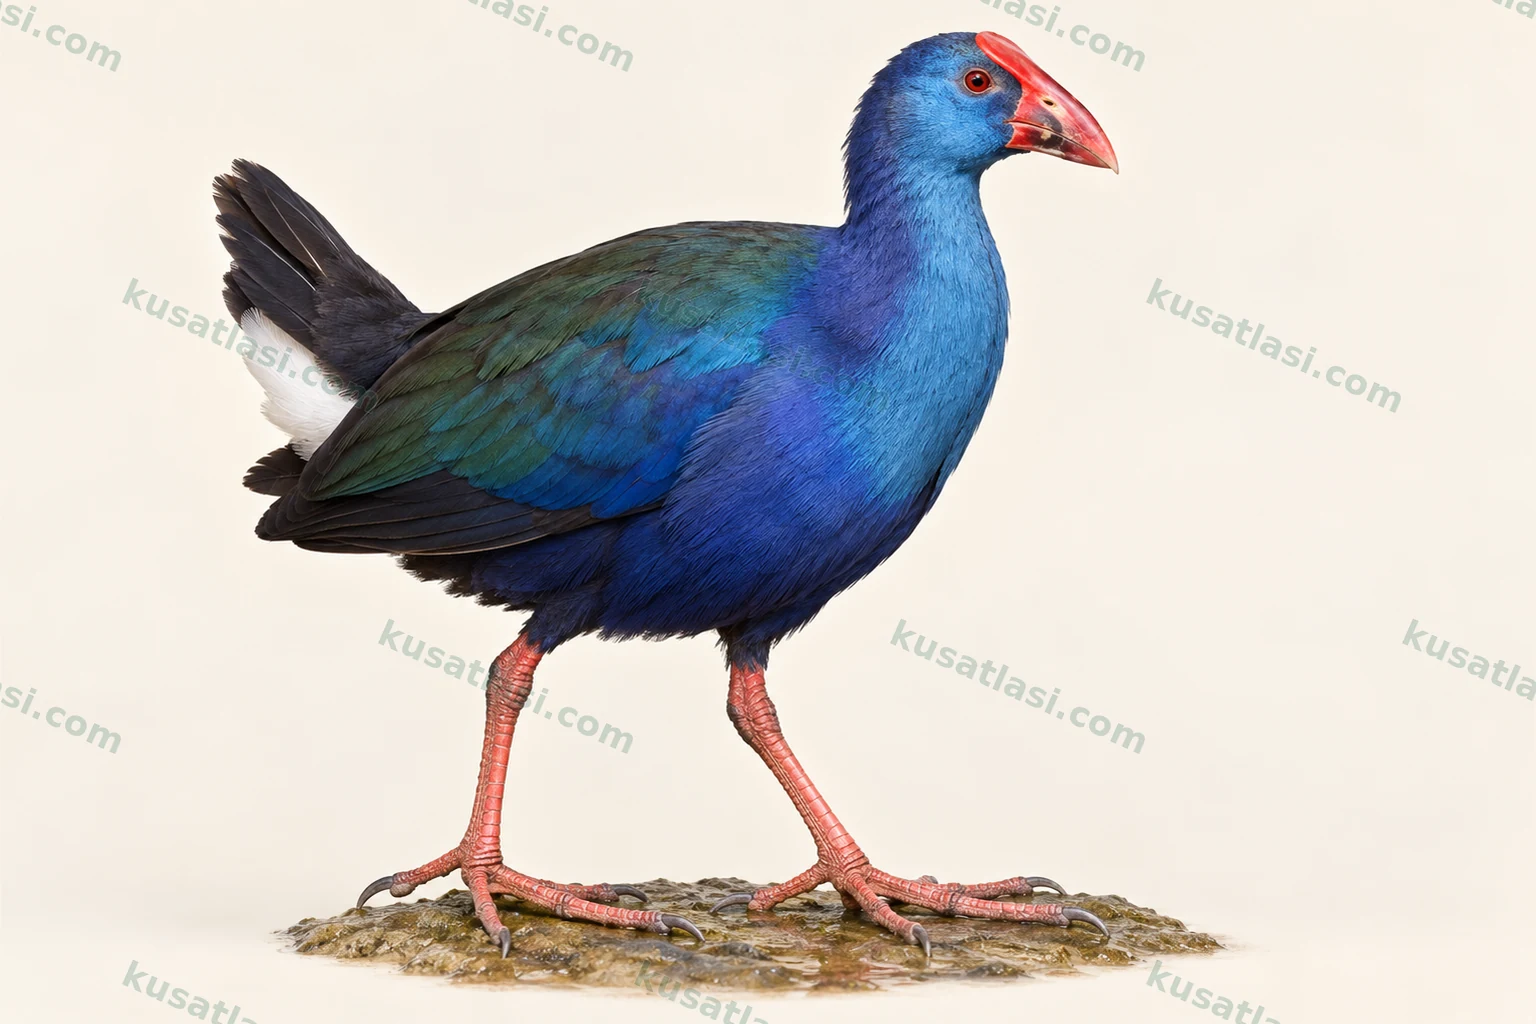
Dans la population africaine, tête et dessous bleu-violet, dos vert bronze, gros bec rouge et longs doigts rougeâtres sont distinctifs ensemble.
Biométrie
Longueur
Mâle40–46 cm
Femelle40–46 cm
Valeur commune à l’espèce
Envergure
Mâle100 cm
Femelle100 cm
Valeur commune à l’espèce
Poids
Mâle528–687 g
Femelle480–737 g
Talève d’Afrique
Zones humides d’Égypte, d’Afrique subsaharienne et de MadagascarGuide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreObservez ensemble le gros bec rouge et la plaque frontale.
Il est vert bronze chez les adultes africains ; tête et dessous sont bleu violacé.
Les longs doigts sont rougeâtres ; distinguez les proches parents plus petits aux pattes jaunes.
Comparer mâle et femelle
 FemelleMâle
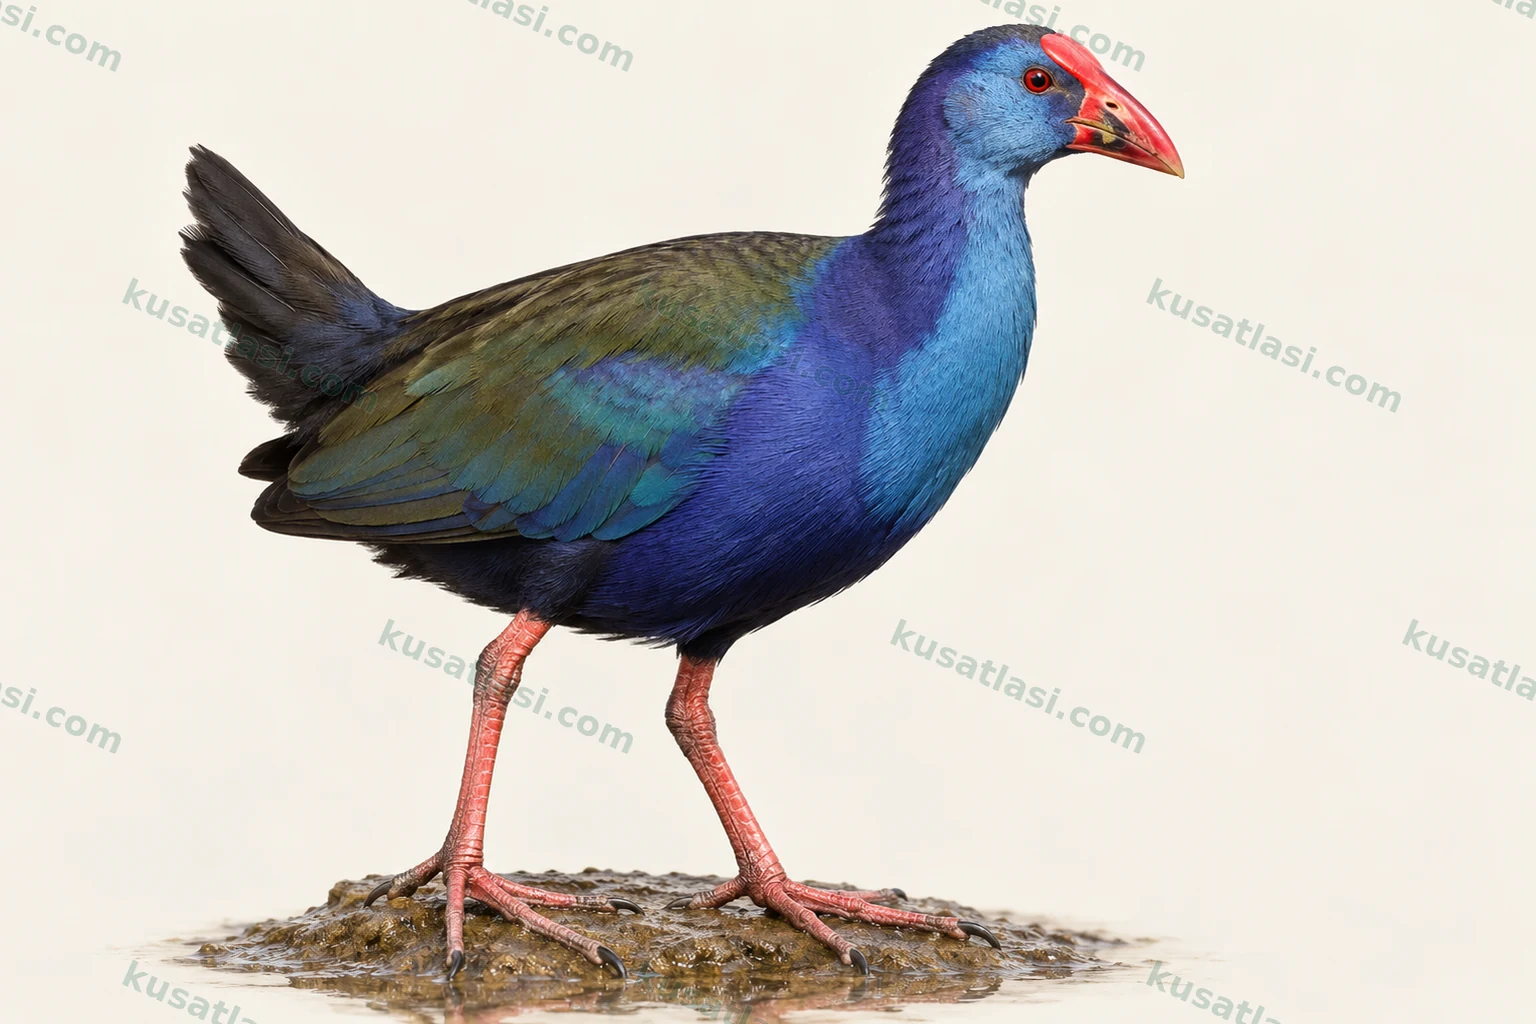
Mâle et femelle adultes ont un dessin de plumage semblable. Les jeunes peuvent avoir le dessus brun et le dessous mêlé de gris et de blanc.
Où le chercher dans son aire naturelle ?
Observez les eaux stagnantes ou lentes au couvert riverain dense.
Le calendrier reproducteur varie régionalement dans l’atlas d’Afrique australe. Ces mois ne constituent pas un calendrier unique pour toute la population africaine.
Janvier
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Sud-ouest du Cap, notice régionale de reproduction : ce mois appartient à la période des mentions reproductrices rapportées. Nord du Botswana, Namibie et nord du Cap, échantillon de l’atlas : ce sont des preuves reproductrices de la période pluvieuse, non généralisées à toute l’aire.
Février
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Sud-ouest du Cap, notice régionale de reproduction : ce mois appartient à la période des mentions reproductrices rapportées. Nord du Botswana, Namibie et nord du Cap, échantillon de l’atlas : ce sont des preuves reproductrices de la période pluvieuse, non généralisées à toute l’aire.
Mars
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Nord du Botswana, Namibie et nord du Cap, échantillon de l’atlas : ce sont des preuves reproductrices de la période pluvieuse, non généralisées à toute l’aire.
Avril
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Nord du Botswana, Namibie et nord du Cap, échantillon de l’atlas : ce sont des preuves reproductrices de la période pluvieuse, non généralisées à toute l’aire.
Mai
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Nord du Botswana, Namibie et nord du Cap, échantillon de l’atlas : ce sont des preuves reproductrices de la période pluvieuse, non généralisées à toute l’aire.
Juin
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Juillet
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Août
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Sud-ouest du Cap, notice régionale de reproduction : ce mois appartient à la période des mentions reproductrices rapportées.
Septembre
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Sud-ouest du Cap, notice régionale de reproduction : ce mois appartient à la période des mentions reproductrices rapportées.
Octobre
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Sud-ouest du Cap, notice régionale de reproduction : ce mois appartient à la période des mentions reproductrices rapportées.
Novembre
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Sud-ouest du Cap, notice régionale de reproduction : ce mois appartient à la période des mentions reproductrices rapportées. Nord du Botswana, Namibie et nord du Cap, échantillon de l’atlas : ce sont des preuves reproductrices de la période pluvieuse, non généralisées à toute l’aire.
Décembre
L’espèce est essentiellement résidente ; l’état de l’eau peut entraîner des déplacements locaux. Sud-ouest du Cap, notice régionale de reproduction : ce mois appartient à la période des mentions reproductrices rapportées. Nord du Botswana, Namibie et nord du Cap, échantillon de l’atlas : ce sont des preuves reproductrices de la période pluvieuse, non généralisées à toute l’aire.
Nid, œuf et incubation
Une grande coupe est construite sur une plateforme végétale au-dessus de l’eau. Les sources régionales donnent 2–5 ou 2–6 œufs et 24–27 jours d’incubation. Première sortie du nid et développement du vol vers huit semaines sont distincts.
Ses sons forts et distinctifs peuvent la révéler dans les roseaux ; un enregistrement ne prouve ni migration ni nid.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
La Talève d’Afrique est un grand oiseau d’eau dont le bec rouge et épais se distingue dans les roseaux. Tête et dessous bleu violacé, face bleu plus pâle et dos verdâtre forment le dessin fondamental de l’adulte. La plaque frontale rouge rejoint le bec ; les longs doigts rougeâtres peuvent se voir lorsqu’il progresse sur les plantes. Une zone blanche apparaît sous la courte queue. Ces signes s’évaluent ensemble : un corps bleu seul n’élimine pas tous les oiseaux ressemblants du même milieu.
La population africaine cataloguée comme Porphyrio madagascariensis est incluse par AviList v2025b dans une espèce plus large sous Porphyrio porphyrio madagascariensis. Cette page décrit la population africaine. Caractères du plumage et mensurations de populations européennes, asiatiques ou australiennes n’y sont pas transférés. African Swamphen reste valable dans les sources employant l’ancienne délimitation d’espèce ; un changement de nom ne fait pas apparaître subitement les oiseaux africains sur d’autres continents.
Aspect général et posture
Malgré son gros corps, l’oiseau peut presque disparaître dans une roselière dense. Le bec haut et presque triangulaire aide à le distinguer des oiseaux d’eau à bec fin. La plaque frontale est nue ; le rouge du bec se prolonge vers le haut. Le cou se détache du corps, sans être aussi long que celui d’un héron. Les doigts sont grands et fins. On peut les voir s’étendre entre les tiges pendant la marche ; lors de l’alimentation, un pied peut remplir une autre fonction.
Dans la population africaine, l’arrière de la calotte et le haut du dos de l’adulte sont violet foncé, tandis que le bas du dos et les ailes fermées sont vert bronze. Le croupion est olive plus sombre et le dessous de la queue blanc. Un changement d’orientation aide à voir cette répartition. L’ombre peut assombrir tout le corps, tandis que le soleil souligne les bleus et les verts. Cette différence d’éclairage ne prouve ni sous-espèce ni sexe distincts. Le blanc sous la queue ressort mieux quand celle-ci est relevée.
Mâles, femelles et jeunes
Mâle et femelle adultes ont des couleurs de plumage semblables. Un grand bec rouge vif ne permet pas d’affirmer un mâle. L’apparence varie avec l’individu, l’âge, la lumière et la posture. Une petite différence de taille entre partenaires n’est pas non plus une clé sexuelle fiable à elle seule. Les planches des deux sexes représentent cet aspect adulte commun, et non deux dessins de couleurs différents inexistants dans la nature.
Les jeunes n’ont pas encore pleinement développé les bleus et verts saturés des adultes. Le dessus peut être plus brun et le dessous gris, avec des taches blanches aux flancs et au ventre. Bec et plaque frontale ne sont pas d’un rouge aussi vif. Chez des individus plus développés mais encore immatures, un mélange de gris foncé et de blanc peut se voir de la poitrine au dessous de la queue. Il ne faut pas assimiler un plumage juvénile à la femelle d’un autre oiseau.
Le développement du plumage est continu ; un dos sombre associé à un dessous clair sur une photo n’indique pas toujours une maladie. On examine d’abord ensemble forme du bec, longs doigts, plaque frontale et disposition des plumes. Des preuves plus détaillées sont nécessaires pour un âge précis en mois ou jours. Les tâches familiales ne se déduisent pas non plus de la seule présence près du nid : des jeunes précédents peuvent aider à certains nids.
Aspect en vol
En vol, le corps paraît gros et les ailes relativement courtes. Les pattes peuvent pendre pendant un court déplacement, puis s’étendre vers l’arrière lors d’un vol plus long. Leur seul angle ne permet donc pas d’identifier une autre espèce. Les premiers mouvements après décollage et la posture de vol établie se regardent séparément. Un oiseau passant juste au-dessus des roseaux n’apparaît que brièvement ; aucun dessin n’est ajouté à une surface alaire non vue.
Longues pattes et bec épais aident à distinguer une talève en vol des petites gallinules du même milieu. Le bleu-vert peut s’assombrir selon la direction du soleil. Le blanc sous la queue n’est pas également exposé sous tous les angles. Marche après la pose et plaque frontale peuvent renforcer l’identification. Entrer dans les roseaux pour provoquer un nouvel envol perturbe le comportement et la sécurité des jeunes ; il faut attendre un vol spontané.
Voix et comportement
L’oiseau caché dans les roseaux se détecte parfois à sa voix puissante. L’atlas régional note que sa grande taille et ses sons forts et distinctifs facilitent les mentions. Le lieu où l’on entend et celui où l’oiseau est réellement vu n’offrent pas la même certitude. Les talèves peuvent être en couples ou en groupes plus nombreux. Plusieurs réunies ne constituent pas automatiquement une seule famille reproductrice ou un groupe migrateur.
En cherchant sa nourriture, elle peut tirer une tige du bec et la tenir d’un pied. Les mouvements de la queue dévoilent le blanc inférieur. Elle est aussi décrite courbant des tiges de roseaux et de cannes en plateformes pour se tenir dessus. Toutes ne sont pas des nids contenant des œufs : des structures de repos et d’utilisation quotidienne existent aussi. Elle peut quitter le couvert pour se nourrir sur une rive dégagée, généralement près de végétation où se réfugier.
Espèces pouvant être confondues
Porphyrio alleni est une proche parente plus petite qui peut occuper certaines des mêmes zones humides africaines. La plaque frontale de l’adulte paraît bleu vif ; on la compare à la plaque rouge et au gros corps lourd de la Talève d’Afrique. Les jeunes pouvant manquer de certains signes adultes, taille, proportions du bec et autres caractères du plumage s’examinent ensemble.
Porphyrio martinicus est un autre oiseau semblable signalé comme visiteur très rare en Afrique du Sud. Son corps plus petit, ses pattes jaunes et l’extrémité jaune du bec diffèrent des pattes rougeâtres et du bec rouge de la Talève d’Afrique adulte. Elle ne doit pas être présentée comme une alternative habituelle dans toute zone humide africaine ; la localité fait partie de l’identification.
Les populations non africaines de Porphyrio porphyrio appartiennent à la même espèce large dans la classification actuelle d’AviList. Les différences géographiques de face et de dos ne sont pas des différences entre mâle et femelle africains. L’aire africaine de cette page ne remplace pas la distribution mondiale de toute l’espèce large.
Répartition mondiale
Ce compte rendu couvre la population madagascariensis d’Égypte, d’Afrique subsaharienne et de Madagascar. Des populations localement discontinues existent de l’Afrique occidentale à l’Éthiopie ; la présence est plus étendue le long des zones humides favorables du centre, de l’est et du sud africains. Dans la région australe, elle n’est pas habituelle dans une grande partie du Karoo et du Kalahari arides. Toutefois, une mention de zone humide dans une région sèche ne transforme pas tout le terrain sec voisin en habitat occupé. La population du Nil égyptien ne signifie pas non plus que chaque roselière côtière du nord africain appartient à cet oiseau.
Situation dans l’aire naturelle
L’évaluation régionale australe de 2025 traite la Talève d’Afrique en Préoccupation mineure. Ce résultat régional ne signifie pas que chaque population de talèves suit la même tendance. Perte de zones humides, suppression des plantes rivulaires et dérangement peuvent agir localement. Elle utilise aussi des milieux artificiels, tels barrages et bassins de traitement ; cette souplesse ne rend pas négligeable la perte des milieux naturels. Des roseaux plus denses peuvent compliquer la détection, et moins de mentions ne signifie pas toujours un déclin de même proportion.
Déplacements saisonniers
Elle est essentiellement résidente ; aucun itinéraire migratoire régulier parcourant chaque année la même longue distance n’a été vérifié. Elle peut se déplacer avec l’assèchement, les variations du niveau d’eau ou de nouvelles inondations. L’atlas rapporte que la présence reproductrice dans la plaine inondable de Nyl peut beaucoup varier entre années humides et sèches. C’est un exemple de mouvement lié aux conditions, pas un mois de départ ou une succession de pays pour tous les oiseaux africains. Les exemples d’observations de la carte ne sont pas reliés en itinéraire migratoire.
Habitat de reproduction
Eaux abritées, stagnantes ou lentes, et végétation aquatique dense comptent ensemble. L’oiseau vit sur les rives de lacs, dans les marais, au bord de cours d’eau à roseaux et sur certains plans d’eau artificiels. Il peut utiliser l’eau douce ou légèrement salée. Roseaux, cannes, massettes et papyrus offrent dissimulation et déplacement. L’eau permanente est typique, mais des zones humides temporaires sont aussi utilisées. La présence d’eau sur la carte ne montre pas à elle seule le couvert riverain nécessaire pour se reproduire.
Emplacement du nid
Une grande coupe végétale est construite sur une plateforme aplatie parmi les plantes denses, généralement sur l’eau ; des tiges voisines peuvent être tirées dessus pour la couvrir. Mâle et femelle contribuent à la construction, avec des aides dans certaines familles. Les sources spécialisées australes rapportent 2–5 ou 2–6 œufs et une incubation de 24–27 jours ou d’environ 25 jours ; les chiffres sont séparés selon la source et la population. Les jeunes peuvent sortir peu après l’éclosion et revenir pour se nourrir ou dormir ; le développement du vol vers huit semaines n’est pas la première sortie du nid.
Utilisation quotidienne du milieu
Elle marche parmi les plantes, monte sur des feuilles flottantes et mange sur la rive. Plateformes de repos et nids reproducteurs ne sont pas confondus. Utiliser un sentier existant hors de la roselière préserve son abri. Courber ou casser les tiges pour dévoiler les nids peut affecter jeunes cachés et adultes.
Que mange-t-elle ?
Les plantes aquatiques constituent une part importante de l’alimentation : pousses fraîches, feuilles, racines, tiges, fleurs et graines sont consommées. Les descriptions spécialisées mentionnent tubercules de nénuphars et parties internes tendres de vieilles tiges de roseaux. Elle prend aussi des aliments animaux, dont mollusques, sangsues et petits crustacés. On ne la décrit donc pas comme exclusivement herbivore. Consommer une proie ne signifie pas qu’elle domine le régime partout ; l’abondance locale compte.
Comment cherche-t-elle sa nourriture ?
Elle peut tirer une tige vers le bas avec le bec, l’immobiliser avec un pied et en arracher des morceaux. Les longs doigts servent à tenir la nourriture autant qu’à marcher. Elle peut plonger tête et cou pour atteindre des parties végétales tendres et grimper aux tiges vers graines et fleurs. Ces gestes se comprennent mieux avec une prise alimentaire visible. Déposer de la nourriture artificielle sur la rive change ses choix naturels et l’espace utilisé. Observer de loin la fragmentation des plantes aide à voir quelle partie est prise.
La classification change, le périmètre africain demeure
AviList v2025b traite le groupe comme une espèce à nombreuses sous-espèces dans l’attente de nouvelles recherches. L’ancienne séparation en six espèces reposait surtout sur l’ADN mitochondrial et les interprétations de différenciation ; un échantillonnage plus dense de l’ADN nucléaire est jugé nécessaire. Cette décision ne prouve pas que toutes les populations géographiques soient identiques. Dos, face, habitats et reproduction locale africains continuent d’être décrits dans leur contexte.
Les doigts tiennent aussi la nourriture
La fonction des longs doigts dans les roseaux se remarque facilement. Tenir une tige d’un pied et en arracher des morceaux du bec attire moins l’attention. Tout objet tenu n’est pas une proie : les plantes alimentaires illustrent clairement le comportement. L’usage conjoint du pied et du bec rappelle que se nourrir ne consiste pas seulement à prendre quelque chose à la surface de l’eau.
Sortir du nid n’est pas voler
Les jeunes peuvent quitter le nid peu après l’éclosion tout en nécessitant soins et protection familiaux. Ils peuvent aussi revenir pour manger ou dormir. Les rémiges se développent ensuite. Première sortie, premier vol et indépendance complète ne sont donc pas une même durée.
Des roseaux plus denses peuvent influencer les comptages
L’évaluation australe souligne que l’épaississement des roselières peut compliquer accès et détection sur certains sites. Pour comprendre un comptage, détectabilité et méthode comptent avec le nombre d’oiseaux. Cette possibilité ne rejette pas automatiquement un vrai déclin, pas plus que tout faible relevé ne démontre une perte de population. Couvert naturel, eau et comptages répétés se considèrent ensemble.