Oiseaux du monde Statut UICNLC · Préoccupation mineureCatégorie mondiale de l'UICN. BirdLife v10 (2025) ; correspondance taxonomique : AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L'année de la liste n'est pas la date d'évaluation de l'espèce. Source et méthode · BirdLife OrdreApodiformesMartinets FamilleApodidaeApodidae
Martinet épineux
Hirundapus caudacutus
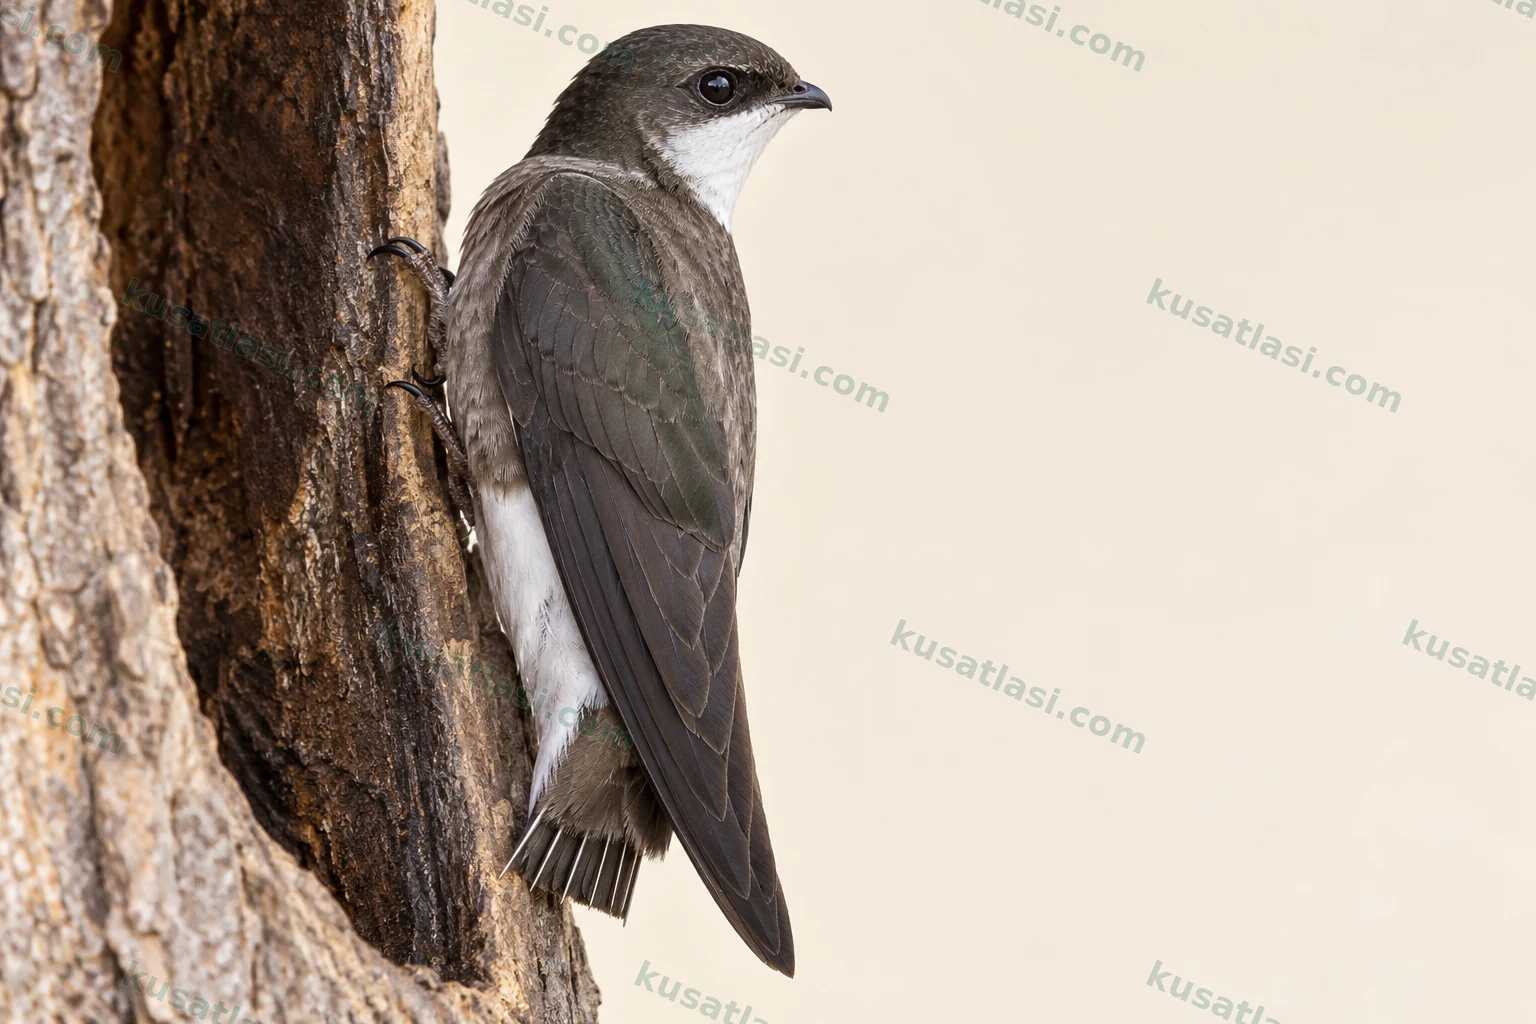
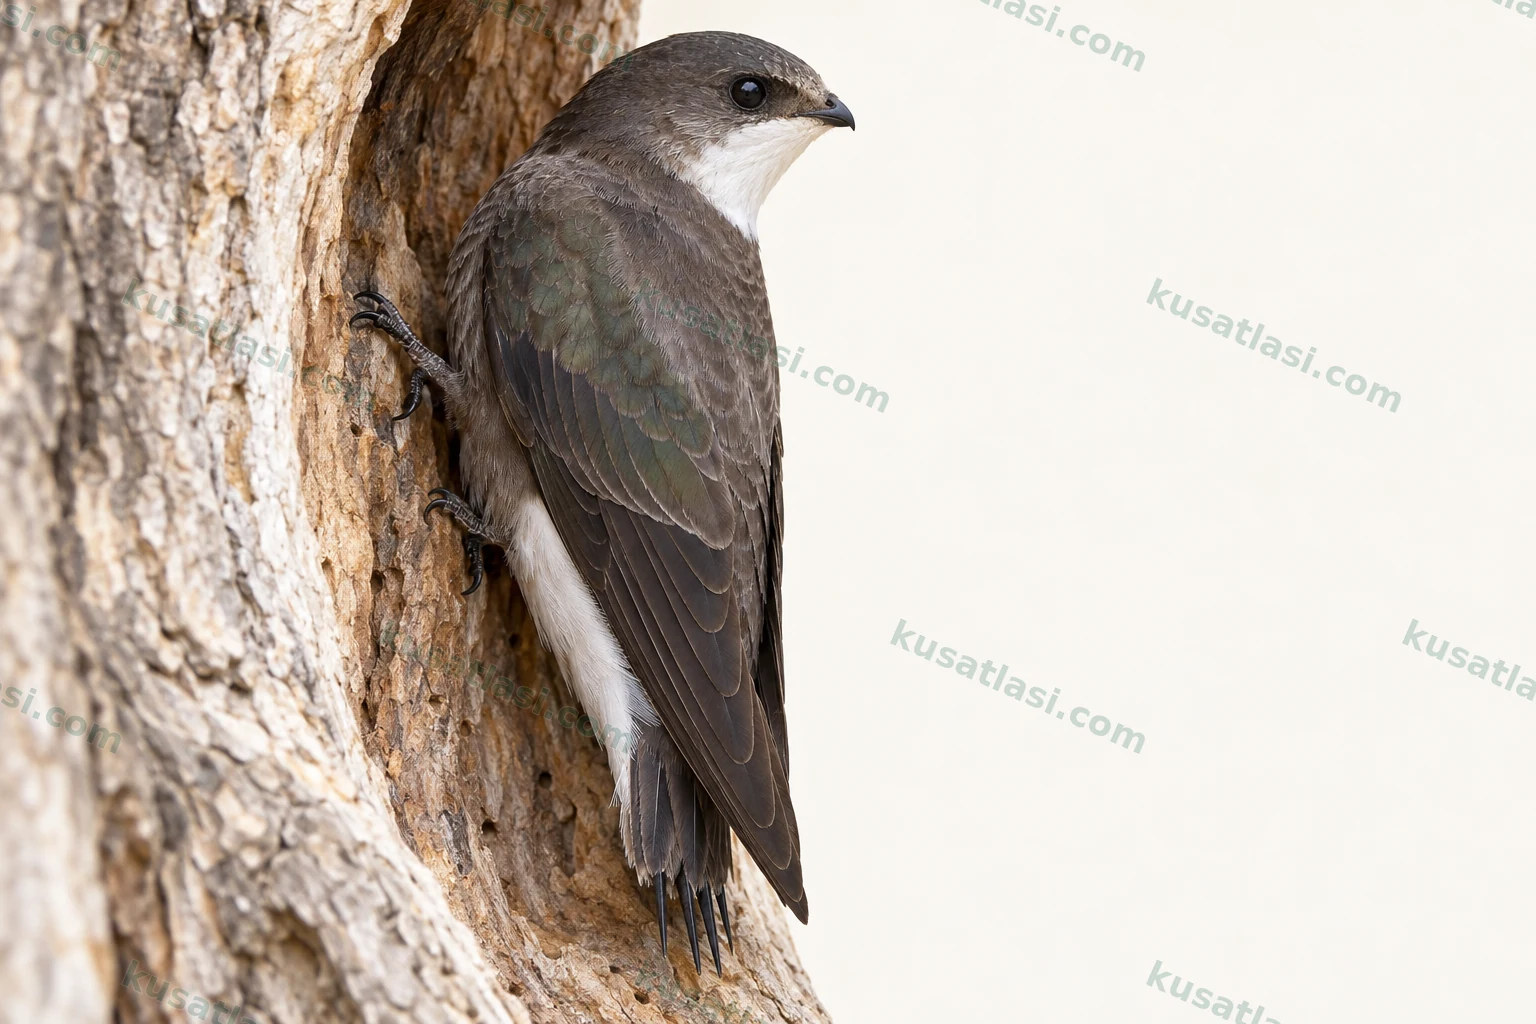
Corps robuste, ailes longues et pointues et queue courte à pointes rigides. La gorge est blanche et le blanc des flancs arrière et du dessous de la queue forme un U.
Biométrie
Longueur
Mâle19–20 cm
Femelle19–20 cm
Valeur commune à l’espèce
Envergure
Mâle49 cm
Femelle49 cm
Valeur commune à l’espèce
Poids
Mâle47,4–169 g
Femelle64,5–125 g
Martinet épineux
Asie orientale et Himalaya. Hors reproduction, la sous-espèce nominale occupe la Nouvelle-Guinée et l’est de l’Australie.Guide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreLa gorge est blanche. Le ventre n’est pas entièrement blanc.
Elle est courte et presque carrée. Les tiges rigides des plumes dépassent de la queue.
Examinez séparément la sous-espèce nominale migratrice et la forme himalayenne.
Comparer mâle et femelle
 FemelleMâle
Les adultes des deux sexes se ressemblent. Le blanc du front peut être moins net chez les jeunes de la sous-espèce nominale.
Où le chercher dans son aire naturelle ?
Cherchez l’oiseau en recherche de nourriture dans le ciel et dans les zones de reproduction associées à des cavités de grands arbres.
Les relevés sont régionaux. L’étude japonaise a relevé des pontes en juin. Le passage vers le sud jusqu’en Australie a lieu de septembre à novembre et le retour vers le nord de mars à avril. Les trajectoires de Tasmanie se concentraient en février et mars.
Janvier
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Aucune date régionale vérifiée n’a été donnée pour ce mois. Cela ne signifie pas que l’espèce est absente localement.
Février
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Les relevés de vol de 2020–2025 sur le site étudié en Tasmanie se concentraient sur cette période.
Mars
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Le retour depuis l’Australie correspond à une période de migration vers le nord. Les relevés de vol de 2020–2025 sur le site étudié en Tasmanie se concentraient sur cette période.
Avril
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Le retour depuis l’Australie correspond à une période de migration vers le nord.
Mai
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Aucune date régionale vérifiée n’a été donnée pour ce mois. Cela ne signifie pas que l’espèce est absente localement.
Juin
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. L’étude de 2018 à Tokachi, au Japon, a relevé des pontes.
Juillet
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Aucune date régionale vérifiée n’a été donnée pour ce mois. Cela ne signifie pas que l’espèce est absente localement.
Août
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Aucune date régionale vérifiée n’a été donnée pour ce mois. Cela ne signifie pas que l’espèce est absente localement.
Septembre
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Il s’agit de la période d’arrivée vers le sud en Australie. Ce n’est pas une période de reproduction.
Octobre
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Il s’agit de la période d’arrivée vers le sud en Australie. Ce n’est pas une période de reproduction.
Novembre
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Il s’agit de la période d’arrivée vers le sud en Australie. Ce n’est pas une période de reproduction.
Décembre
La sous-espèce nominale migre à longue distance. On n’applique pas un itinéraire annuel commun à toutes les sous-espèces. Aucune date régionale vérifiée n’a été donnée pour ce mois. Cela ne signifie pas que l’espèce est absente localement.
Nid, œuf et incubation
L’oiseau niche dans des cavités de grands arbres. L’étude japonaise indique 4–6 œufs dans les cavités naturelles et 5–7 dans les artificielles. Dans les échantillons de 2018, l’incubation durait en moyenne 19,3 jours dans six nids et la période au nid des jeunes 39,8 jours dans cinq nids.
La description spécialisée mentionne des séries de gazouillis aigus aux accents de cri.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
Le Martinet épineux Hirundapus caudacutus est un grand martinet aux ailes longues et pointues, au corps robuste et à la queue courte. La gorge blanche s’examine avec le blanc à l’arrière des flancs et sous la queue. Ces zones claires peuvent dessiner un U sous le corps, mais le ventre n’est pas entièrement blanc. Le milieu plus clair du dos aide à le reconnaître de dessus. Les tiges rigides des plumes qui dépassent de la queue lui donnent son aspect épineux.
Son nom anglais est White-throated Needletail et sa famille actuelle est Apodidae. Le nom Chaetura caudacuta des sources anciennes est rattaché à cette espèce lorsque la synonymie est correctement établie. C’est un martinet, pas une hirondelle. On examine ensemble sa queue courte et la structure puissante de ses ailes. Même pour un oiseau très rapide, la vitesse ne suffit pas à l’identifier avec certitude. On compare la position des ailes, la forme du corps et l’emplacement des zones blanches dans la même observation.
Aspect général et posture
La description originale de musée de Hartert indique un dessus de tête, une nuque et des côtés de la tête brun foncé à reflets métalliques. Le milieu du dos est brun plus clair que le plumage voisin. Les ailes et la queue sont sombres et peuvent avoir des reflets verdâtres ou bleutés. Ces reflets changent selon l’angle. Des couleurs différentes sous plusieurs éclairages ne prouvent pas l’existence d’une nouvelle forme liée au sexe ou à la saison.
La gorge et le menton sont blancs. Le reste des parties inférieures est surtout brun fuligineux, tandis que l’arrière des flancs, le dessous de la base de la queue et les couvertures sous-caudales sont nettement clairs. Le plumage sombre du corps sépare la gorge blanche du blanc de l’arrière. Décrire ces deux zones comme un ventre blanc continu change le diagnostic. Une partie claire de la queue visible sous l’aile n’appartient pas pour autant à l’aile elle-même.
Chez l’adulte de la sous-espèce nominale, les plumes claires du front et de la région entre le bec et l’œil peuvent former une bande blanche. La forme himalayenne nudipes diffère par le blanc du front. Hartert l’a décrite séparément comme une forme dépourvue de front blanc. La liste actuelle les traite comme deux sous-espèces d’une même espèce. L’absence de front blanc visible, surtout chez un jeune ou un oiseau de l’Himalaya, ne suffit donc pas à écarter l’espèce.
La description originale signale du blanc sur la face interne des plumes les plus intérieures de l’aile. Il ne s’agit pas d’une large bande blanche traversant toute l’aile. Une petite zone claire vue sur le dessus de l’aile peut changer d’aspect lorsque l’aile s’ouvre. Le milieu clair du dos est un autre caractère. N’attribuez pas un dessin détaillé de l’aile d’après une petite image floue sans savoir quelle surface des plumes est visible.
Mâles, femelles et jeunes
Les mâles et femelles adultes ont un plumage semblable. La description ancienne de musée indique que la femelle peut être un peu plus petite, mais ne fournit pas de clé photographique valable pour chaque oiseau. La queue courte, la gorge blanche et le dos plus clair ne sont pas réservés aux mâles. La distance et la position des ailes des oiseaux comparés modifient aussi leur taille apparente.
Chez les jeunes de la sous-espèce nominale, le blanc du front peut être moins net. Hartert décrit aussi des taches brunes sur des plumes blanches sous la queue de certains jeunes spécimens. Ces taches ne sont pas considérées comme propres aux femelles adultes. On examine séparément l’effet de l’âge et celui de la forme géographique quand le blanc frontal manque. Une seule petite zone ne suffit pas à estimer l’âge. On considère le plumage entier et les informations fiables sur le relevé.
Aspect en vol
Les ailes longues et pointues et la queue courte presque carrée donnent la silhouette d’un grand martinet. L’aspect des ailes recourbées vers l’arrière peut changer pendant le mouvement. Les tiges rigides à l’extrémité de la queue sont parfois invisibles de loin. On examine la gorge blanche et le U blanc à l’arrière avec les autres marques du plumage qui sont visibles. De petits oiseaux volant dans le même ciel ne sont pas nécessairement de la même espèce.
Voix et comportement
La description spécialisée de Cornell mentionne des séries de gazouillis aigus aux accents de cri. Un son bref émis par un oiseau non observé ne suffit pas à identifier l’espèce. La description du musée australien indique que ces oiseaux, autrefois considérés comme ne se posant jamais, peuvent passer la nuit dans des arbres. Passer beaucoup de temps en vol ne signifie pas voler sans interruption toute la vie. Repos, alimentation et reproduction sont des activités distinctes.
Espèces semblables
Pour comparer Apus pacificus, cherchez sa queue nettement fourchue et son croupion blanc. Le Martinet épineux a une queue plus courte, presque carrée, et le blanc se trouve à la gorge et sous la queue. Avant de comparer ces deux zones blanches différentes, établissez si l’arrière de l’oiseau est vu du dessus ou du dessous.
Chez Hirundapus giganteus, la gorge sombre est importante pour la comparaison. La gorge blanche marquée du Martinet épineux se reconnaît avec sa queue courte à pointes rigides et son corps robuste. Les descriptions anciennes de Hartert traitent aussi d’autres formes de Hirundapus. La silhouette d’un grand martinet ne suffit donc pas à identifier l’espèce. L’âge et l’éclairage comptent également.
Répartition mondiale
La liste actuelle situe l’aire de reproduction de la sous-espèce nominale du centre-sud et de l’est de la Russie jusqu’aux îles Kouriles et au Japon, et vers le sud jusqu’au nord de la Mongolie, au nord-est de la Chine et à la péninsule coréenne. Hors reproduction, elle occupe la Nouvelle-Guinée et l’est de l’Australie, y compris la Tasmanie. Nudipes s’étend de l’Himalaya au sud-ouest de la Chine. Les déplacements des deux formes géographiques ne sont pas supposés identiques.
Situation dans son aire naturelle
La liste mondiale indique LC, tandis que l’évaluation australienne de conservation indique Vulnérable. Les deux évaluations ont des périmètres différents. Les observations en Australie ne prouvent pas qu’il s’y reproduise. Ne pas trouver l’oiseau sur un site étudié ne démontre pas son absence de tout le continent. L’estimation générale de la carte et les relevés datés et localisés se lisent séparément.
Déplacements et migration
Une étude fondée sur des enregistrements de lumière a documenté un trajet entre le nord du Japon et l’est de l’Australie. Les trajets aller et retour peuvent différer et dessiner un grand huit. Ce n’est pas un itinéraire fixe pour tous les individus. L’étude de Tarburton, qui examine des observations australiennes et asiatiques, décrit aussi différents passages. Des observations dispersées dans plusieurs pays ne permettent pas de tracer une route de vol exacte. Le même long trajet n’est pas supposé pour la forme himalayenne.
Habitat de reproduction
L’étude originale dans la plaine japonaise de Tokachi a examiné des cavités dans de grands arbres subsistant dans des bandes boisées et des pâturages au sein d’un paysage agricole. La présence d’une grande cavité ne signifie pas que tous les arbres conviennent à la nidification. Le site du nid et l’espace de recherche de nourriture en vol ne relèvent pas de la même échelle.
Emplacement du nid
L’étude a relevé 5–7 œufs dans les cavités artificielles et 4–6 dans les cavités naturelles comparées. En 2018, l’incubation a duré en moyenne 19,3 jours dans six nids et la période au nid des jeunes 39,8 jours en moyenne dans cinq nids. Il s’agit de chiffres publiés pour l’échantillon japonais, et non de durées fixes pour toutes les sous-espèces et toutes les années. Les mesures directes restent distinctes des anciennes compilations générales.
Utilisation quotidienne du milieu
En chassant dans les airs, l’oiseau peut passer au-dessus des forêts et des clairières. Le compte rendu du musée mentionne aussi le repos nocturne dans les arbres. Ne vous approchez pas de l’arbre du nid, ne bouchez pas l’entrée de la cavité et n’essayez pas de faire décoller l’oiseau. La présence locale peut varier selon la nourriture et les conditions météorologiques. Un bref passage n’est pas interprété comme un site de nidification permanent.
Que mange-t-il ?
La description spécialisée du musée cite des insectes volants comme les termites, fourmis, coléoptères et mouches. Cette liste n’indique pas des proportions identiques dans toutes les régions. AVONET le classe aussi parmi les oiseaux qui prennent des invertébrés en vol. Traverser un essaim ne prouve pas que l’oiseau mange toutes les espèces présentes. On note séparément les proies réellement capturées.
Comment chasse-t-il ?
Il capture les insectes en vol grâce à une large ouverture du bec. Les mouvements de l’air et la répartition des insectes peuvent influer sur la zone de recherche. La végétation au sol peut être simplement la surface survolée. Ce passage ne signifie pas que l’oiseau cherche sa nourriture à terre. On note la direction, la hauteur du vol et toute proie identifiable. Une image d’un passage très rapide ou élevé ne permet pas de déterminer l’espèce de l’insecte ni d’estimer la masse de la proie ou la consommation quotidienne. L’activité alimentaire locale n’est pas supposée constante pendant toute la migration.
Une vie aérienne ne signifie pas que l’oiseau ne se pose jamais
Le compte rendu du musée australien indique que les oiseaux autrefois réputés ne jamais se poser peuvent se reposer dans les arbres. Les voir souvent en vol ne montre pas qu’ils volent aussi pendant toutes les heures où on ne les voit pas. Cette distinction compte dans la description des martinets migrateurs. Entrer dans une cavité de nidification et se reposer sur une branche dégagée sont également deux comportements différents.
Des relevés de suivi ne sont pas un recensement
En Tasmanie, un suivi automatisé a relevé 2 982 trajectoires de vol en 2020–2025. Les chercheurs expliquent qu’un même individu pouvait être revu et que certains oiseaux pouvaient ne jamais être enregistrés. Ce nombre ne correspond pas à exactement 2 982 individus distincts ni à toute la population locale. Le fait que 86 % des relevés aient été produits en février et mars constitue également un résultat saisonnier du site étudié.
Passer à la hauteur du rotor n’équivaut pas à une collision
Dans la même étude, certaines trajectoires ont traversé la hauteur balayée par le rotor. Un tel passage indique une rencontre possible, mais pas la mort d’un oiseau à chaque passage. Un relevé de vol et la découverte effective d’un oiseau mort sont des preuves différentes. Transformer un indicateur de risque en taux certain de mortalité change le résultat de l’étude.
Le front blanc n’est pas identique chez tous les oiseaux
La description de musée de Hartert indique que le blanc du front peut être plus faible chez les jeunes de la sous-espèce nominale. Son absence chez la forme himalayenne est un caractère géographique distinct. On ne confond pas l’âge et la sous-espèce pour trancher d’après une seule photo. On recherche aussi des marques plus larges, comme la gorge blanche et le dessin du corps.
La migration peut suivre des trajets différents à l’aller et au retour
Dans l’étude entre le Japon et l’Australie, les trajets aller et retour évoquent un huit. Cela ne donne pas une route fixe à tracer pour toute l’espèce. Le suivi indique quelle population reproductrice est liée à quelle zone hors reproduction. Il faut des preuves distinctes pour appliquer le même trajet à une autre sous-espèce ou aux individus qui n’ont pas été suivis.