Oiseaux du monde Statut UICNLC · Préoccupation mineureCatégorie mondiale de l'UICN. BirdLife v10 (2025) ; correspondance taxonomique : AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L'année de la liste n'est pas la date d'évaluation de l'espèce. Source et méthode · BirdLife OrdrePasseriformesPassereaux FamilleLeiothrichidaeLeiothrichidae
Cratérope rubigineux
Argya rubiginosa
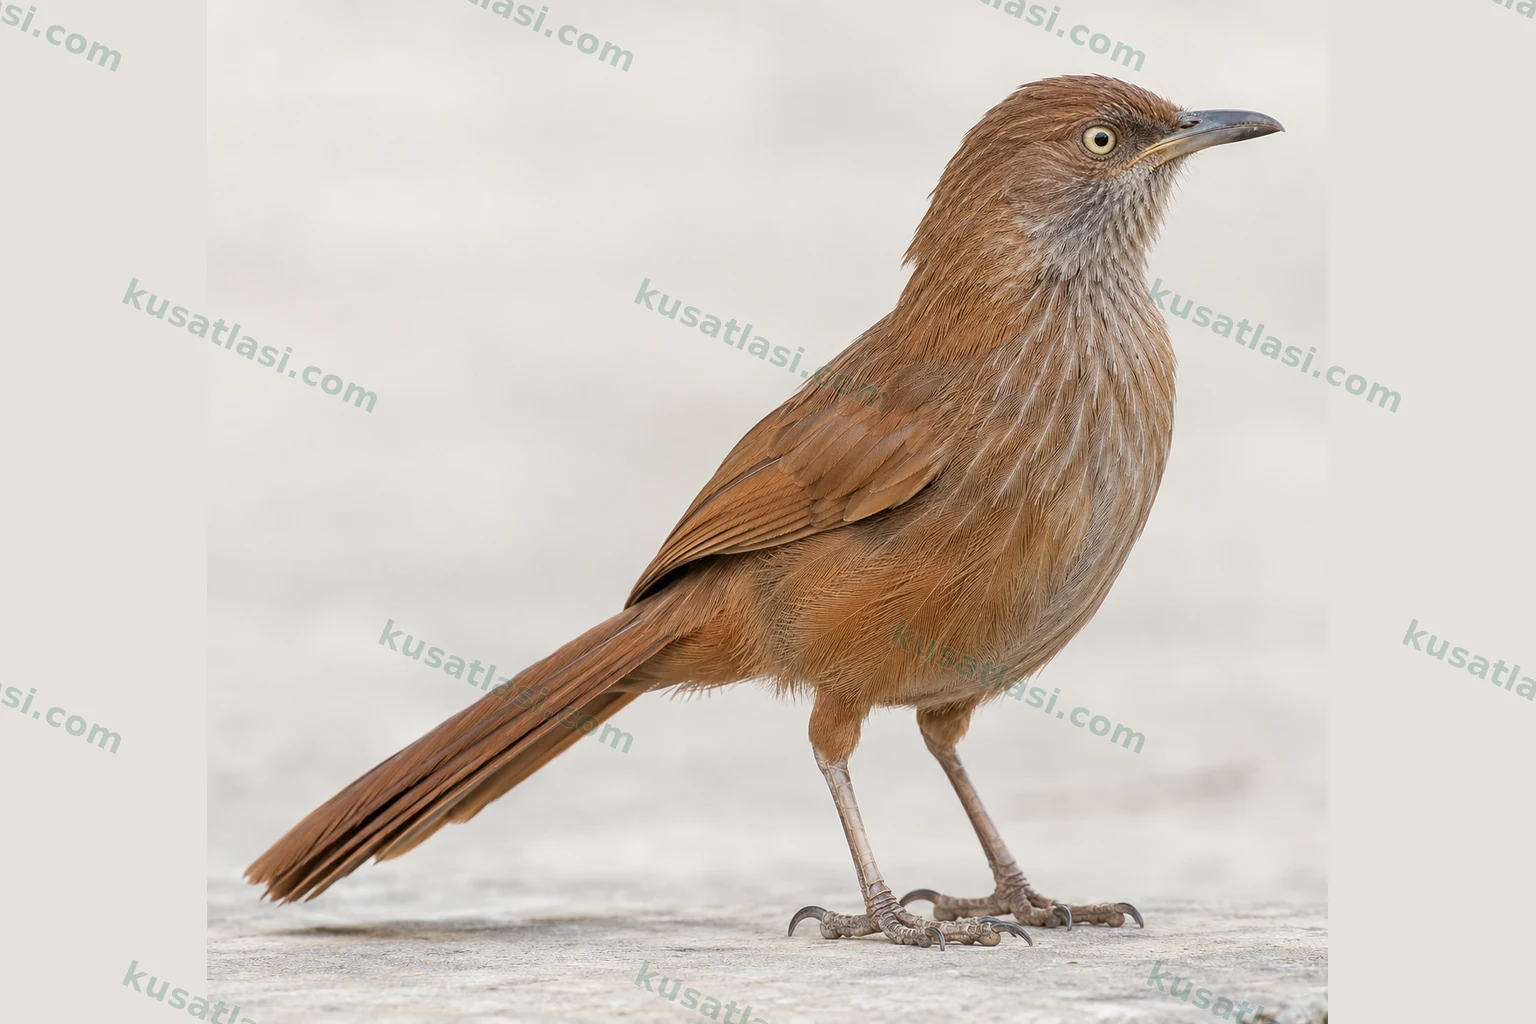
Longue queue, parties inférieures cannelle chaud et œil clair de l’adulte ; petits groupes circulant sous le couvert.
Biométrie
Longueur
Mâle19–23 cm
Femelle19–23 cm
Valeur commune à l’espèce
Longueur de l’aile
Mâle8,34 cm
Femelle8,34 cm
Valeur commune à l’espèce
Poids
Mâle36–40 g
Femelle39–50 g
Cratérope rubigineux
Broussailles de l’est et du nord-est de l’AfriqueGuide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreExaminez les parties inférieures chaudes avec la longue queue.
Ne confondez pas l’œil clair de l’adulte avec l’œil plus sombre d’un jeune.
Suivez séparément les autres cratéropes se nourrissant à leurs côtés.
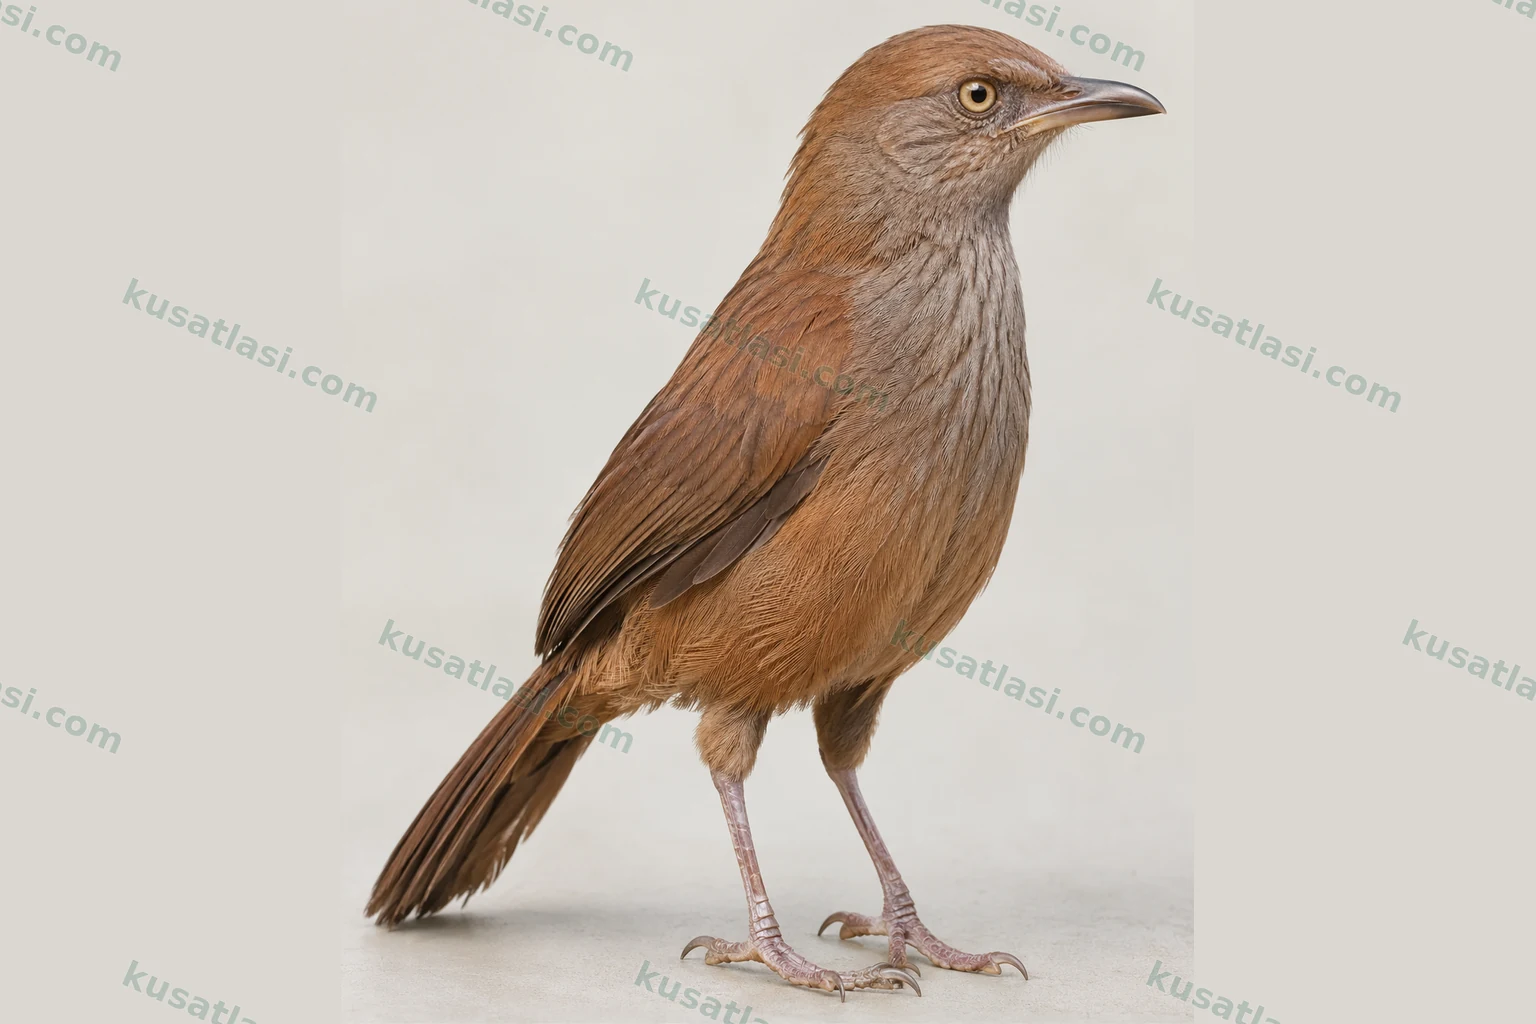
Comparer mâle et femelle
 FemelleMâle
Les mâles et femelles adultes ne se distinguent pas sûrement à l’aspect ; les jeunes peuvent avoir les yeux plus sombres.
Où le chercher dans son aire naturelle ?
Observez à distance sous les buissons, aux lisières boisées et dans les lits de cours d’eau couverts.
Les événements directement observés dans l’étude de terrain kenyane sont présentés ; il ne s’agit pas de dates de ponte.
Janvier
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Ol ari Nyiro, Kenya : données de jeunes, et non mois précis de ponte.
Février
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Ol ari Nyiro, Kenya : données de jeunes, et non mois précis de ponte.
Mars
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Avril
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Ol ari Nyiro, Kenya : des adultes ont été vus portant des matériaux de nid.
Mai
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Ol ari Nyiro, Kenya : données de jeunes, et non mois précis de ponte.
Juin
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Ol ari Nyiro, Kenya : un adulte a été vu apportant de la nourriture dans le couvert.
Juillet
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Ol ari Nyiro, Kenya : données de jeunes, et non mois précis de ponte.
Août
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Septembre
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Octobre
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Novembre
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Décembre
L’espèce est essentiellement résidente ; l’utilisation locale de l’espace et la visibilité varient. Aucune date régionale vérifiée propre à ce mois n’a été fournie ; cela ne signifie pas une absence locale.
Nid, œuf et incubation
L’étude originale kenyane n’a trouvé aucun nid ; elle a noté des adultes portant des matériaux et des jeunes. Le nombre exact d’œufs, la durée d’incubation et la durée du séjour au nid n’ont pas été vérifiés.
De fins cris de contact brefs et des séquences sifflées aident à suivre le groupe dans les buissons.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
Le Cratérope rubigineux Argya rubiginosa est un oiseau brun chaud à longue queue qui parcourt les broussailles d’Afrique orientale en petits groupes. Les parties inférieures cannelle roussâtre, l’œil clair de l’adulte et le bec fin s’examinent ensemble. Lorsqu’il se nourrit sous les buissons, le corps entier peut rester caché et l’on entend d’abord de petits cris doux. Son nom ne signifie pas que chaque individu soit d’un roux vif. L’usure des plumes et la lumière peuvent rendre les parties inférieures du même oiseau plus brunes ou plus pâles.
Le nom anglais Rufous Chatterer correspond à ce taxon. Les anciennes publications scientifiques peuvent employer Turdoides rubiginosa ou Turdoides rubiginosus ; il faut les rattacher au nom actuel Argya rubiginosa avant de lui attribuer la biologie d’autres cratéropes. L’espèce appartient aujourd’hui aux Leiothrichidae. L’ancienne acception large des Timaliidae ne permet pas d’appliquer à cet oiseau les comportements de toute cette famille. Les déplacements en groupe constituent un indice utile, mais ne suffisent pas : d’autres cratéropes des régions voisines circulent aussi en bandes.
Aspect général et posture
Les parties supérieures sont brun olivâtre et les parties inférieures d’une teinte cannelle plus chaude et jaunâtre. Une faible trace de sourcil peut être visible. Lors d’examens de spécimens kenyans, les bandes claires des plumes pectorales ont pu donner un aspect strié aux oiseaux au plumage usé ; chaque strie de la poitrine ne doit donc pas être assimilée au fort dessin écailleux d’une autre espèce. La longue queue se remarque entre les buissons. La relever est un instant de comportement, et non un angle conservé dans toutes les postures.
La mandibule supérieure paraît souvent grise ou sombre, l’inférieure pouvant être plus claire, couleur corne jaunâtre. Décrire tout le bec comme jaune vif masquerait la variabilité observée sur le terrain et les spécimens. Les yeux des adultes ont été notés jaunes à jaune pâle. L’ombre d’un buisson peut les assombrir ; il faut séparer la couleur de l’iris de celle de la pupille. Les parties inférieures chaudes, l’aspect du bec, la longue queue et l’œil clair réunis permettent une identification plus sûre qu’une simple impression colorée.
Mâles, femelles et jeunes
On ne dispose pas d’une distinction fiable des sexes adultes fondée sur la couleur. Il ne faut pas supposer que l’oiseau le plus grand ou le plus roux d’un groupe est mâle, ni que le plus silencieux est femelle. Le groupe peut réunir des individus d’âges et d’états de plumage différents. Lorsque le sexe n’est pas connu, cette incertitude doit être conservée.
Dans l’étude de terrain kenyane, les jeunes avaient les yeux plus foncés que les adultes, entre gris brunâtre et gris plus clair. Chez les jeunes venant de prendre leur envol, la commissure pâle du bec peut être visible. Ces caractères associés aident à estimer l’âge, mais une seule photographie d’un œil à l’ombre ne le détermine pas. Les jeunes peuvent suivre les adultes et quémander ; un membre silencieux du groupe n’est pas nécessairement un jeune de l’année. Il importe de noter quel individu montre chaque comportement.
L’arrivée d’un ou de deux jeunes dans un groupe ne donne pas directement le nombre total d’œufs du nid. Tous les jeunes ne sont peut-être pas visibles à la fois et tous n’ont peut-être pas survécu. L’étude originale kenyane précise qu’aucun nid n’a été trouvé. Les observations de jeunes appuient l’existence d’une reproduction, mais ne prouvent ni une durée exacte d’incubation ni la répartition des soins. La présence de nombreux oiseaux ne suffit pas à transférer à cette espèce, comme règle établie, l’aide à l’élevage connue chez d’autres cratéropes.
Aspect en vol
L’oiseau peut effectuer de courts vols entre les taches de végétation basse ; sa longue queue et ses ailes d’aspect assez arrondi sont utiles. Lorsque les membres d’un groupe traversent successivement une ouverture, il n’est pas toujours facile de voir la tête et les parties inférieures de chacun. Identifier le premier ne permet pas d’attribuer le même âge et le même sexe à tous les suivants. Suivre le point où il se pose aide à le retrouver dans les broussailles. Si la vue reste partielle, une silhouette dont seule la queue est visible n’a pas à devenir une identification certaine.
Voler d’un bout à l’autre des broussailles peut relever des déplacements quotidiens. L’étude originale n’a pas confirmé de longue migration régulière ; inversement, ne pas voir les oiseaux chaque jour sur un site ne prouve pas qu’ils migrent. Il ne faut pas confondre l’étendue d’un espace utilisé et couvert avec la fréquence des visites à un point donné.
Voix et comportement
Des cris brefs, fins, sifflés ou gazouillés et les voix des oiseaux qui se rassemblent peuvent révéler la position du groupe dans la végétation. L’étude kenyane décrit une voix plus douce que celle de certains autres cratéropes, mais émise fréquemment. Le volume sonore ne permet donc pas à lui seul d’estimer le nombre de groupes. Une longue séquence lancée du sommet d’un buisson et de brefs cris de contact entre compagnons s’écoutent séparément. Il importe de vérifier visuellement l’espèce présente dans la direction du son.
Des appels réciproques et de courtes bagarres ont été observés lors de certaines rencontres entre groupes. Cela ne signifie ni que toutes les rencontres se terminent ainsi ni que toutes leurs relations sociales sont connues. L’espèce peut se nourrir derrière d’autres bandes de cratéropes et arriver à l’eau après elles. Une telle association ne prouve pas que tous les oiseaux appartiennent au même nid ou à la même famille. S’ils se retirent dans la végétation à la vue d’une personne, augmentez la distance ; ne les faites pas sortir pour obtenir une photographie entière.
Espèces pouvant prêter à confusion
Le Cratérope de Sharpe Turdoides sharpei peut paraître plus sombre et plus massif ; la zone sombre entre le bec et l’œil ainsi que l’œil nettement clair aident à comparer. La même étude kenyane le traite comme une espèce distincte du Cratérope rubigineux. L’œil clair pouvant apparaître chez les deux, il ne suffit pas. La teinte chaude des parties inférieures, le volume du corps et la partie sombre de la face s’examinent ensemble.
Le Cratérope brun Turdoides plebejus peut aussi se tenir en groupes autour de la végétation. Les deux espèces se sont nourries ensemble dans certains secteurs : on peut donc facilement associer la voix d’un groupe à l’aspect de l’autre. Comparez à distance égale l’allure plus petite et les parties inférieures chaudes du Cratérope rubigineux. Si les couleurs et les proportions restent mal vues, suivre chaque individu est plus juste que nommer tout le groupe d’après l’espèce la plus apparente.
Répartition mondiale
L’espèce occupe les broussailles favorables d’Afrique orientale et nord-orientale. Son aire naturelle comprend les secteurs indiqués dans la description de l’espèce en Éthiopie, autour de l’Érythrée, dans la région du Soudan et du Soudan du Sud, en Ouganda, au Kenya, en Somalie et en Tanzanie. Cela ne signifie pas que toute la surface de ces pays soit utilisée ; les différentes formes locales occupent des secteurs différents. Un climat chaud ou des broussailles ne garantissent pas à eux seuls la présence de l’oiseau. Les mentions attribuées au taxon doivent être lues avec les informations régionales sur l’habitat.
Situation dans son aire naturelle
L’étude d’Ol ari Nyiro, au Kenya, le décrit comme un résident discret, mais régulièrement rencontré. Ce résultat ne donne pas la même abondance pour tout le Kenya ou toute l’Afrique orientale. La recherche de nourriture sous les buissons, les cris doux et les déplacements du groupe dans un vaste entourage réduisent sa détectabilité lors de courtes visites. L’augmentation des secteurs accessibles aux chercheurs au fil du temps influence aussi les mentions ; davantage de données ne signifie pas toujours une croissance de population. Des observations insuffisamment répétées ne permettent pas de conclure à l’absence.
Déplacements et migration
L’espèce est considérée comme essentiellement résidente ; aucune route régulière de migration à longue distance n’a été confirmée. Être résident ne signifie pas rester immobile toute l’année sous le même buisson. Il faut suivre l’utilisation de la nourriture, de l’eau et des abris. Dans l’étude kenyane, les rencontres autour du même campement pouvaient devenir moins fréquentes en période sèche, sans prouver un départ de toute la région. Si les individus ne sont pas marqués, un groupe revu quelques jours plus tard n’est pas nécessairement le même. Les données saisonnières s’interprètent séparément de l’aire naturelle et des preuves de reproduction.
Milieu de reproduction
L’espèce peut utiliser les broussailles basses et denses, les lisières boisées, les lits de cours d’eau buissonnants et les prairies pourvues de taches d’abri. Elle ne dépend pas uniquement de forêts intactes ; un terrain ouvert dont toute couverture a été supprimée n’est cependant pas le même habitat. L’étude de terrain kenyane comporte des mentions au-dessus de deux mille mètres. Employer une ancienne limite altitudinale plus basse comme plafond immuable exclurait ces données. Une observation régionale ne signifie pas que la même altitude soit préférée dans toute l’aire.
Emplacement du nid
L’étude kenyane consultable de manière fiable n’a pas découvert directement de nids. Des adultes transportant des matériaux et des jeunes ont été observés ; ce sont des indices liés à la reproduction, mais ils ne mesurent ni la structure d’un nid achevé ni la durée d’incubation. Les durées d’incubation et de séjour au nid n’étant pas confirmées, celles d’un autre cratérope ne sont pas transférées. Quelques jeunes visibles ne permettent pas de calculer le nombre d’œufs. Il ne faut pas suivre un oiseau porteur de matériaux jusque dans les broussailles pour mettre son nid à découvert.
Utilisation quotidienne de l’espace
Le dessous de la végétation peut servir à se nourrir et se cacher, le sommet des buissons à vocaliser et l’eau proche à boire ou se baigner. De courts déplacements relient ces espaces. Ne pas voir un groupe au même point pendant quelques jours ne prouve pas qu’il ne l’utilise jamais. Préserver les liens entre taches buissonnantes protège un espace de vie plus large que le seul pourtour d’un récipient d’eau. Il faut observer sans faire attendre longtemps les groupes venant à l’eau naturelle et sans obstruer leur couverture de fuite.
Que mange-t-il ?
Les observations alimentaires mettent en évidence de petits invertébrés, surtout des insectes sous la végétation. L’étude kenyane mentionne aussi une alimentation associée à des peaux de mangue et de papaye laissées par des humains. Ces cas particuliers ne doivent pas être présentés comme une proportion dominante de fruits dans l’alimentation naturelle de chaque saison. Piquer une peau et en extraire un insecte sont deux événements distincts ; une bouchée non vue n’est pas identifiée. Un seul insecte apporté aux jeunes ne prouve pas que toute l’alimentation adulte se compose de cet insecte.
Comment recherche-t-il sa nourriture ?
Il explore du bec les débris au sol et sous les buissons ; il peut tirer, soulever ou écarter des fragments végétaux. La recherche de nourriture au fil de petits bonds au sol peut alterner avec des retours à l’abri. L’étude a observé une recherche alimentaire derrière des cratéropes plus grands. Les preuves ne suffisent pas à en faire partout une association obligatoire ou une relation à bénéfices égaux. Noter séparément comment différentes espèces arrivant dans la même ouverture se suivent est plus informatif.
Soulever les feuilles devant l’oiseau ou lui donner à manger pour voir ses aliments modifie son comportement naturel. Il faut distinguer les bouchées réellement prises sous les buissons des simples mouvements de recherche du bec. La dominance autour de l’eau et de la nourriture ne prouve pas que chaque membre du groupe puisse manger autant. Un bref épisode alimentaire ne permet de calculer ni les besoins énergétiques quotidiens du groupe entier ni ses proportions alimentaires ; aucun chiffre n’est ajouté sans vérification.
Même une longue étude peut ne pas trouver le nid
L’étude de Short et Horne à Ol ari Nyiro repose sur plusieurs années d’observations de terrain. Leur précision explicite qu’aucun nid de cette espèce n’a été trouvé constitue donc un détail scientifique important. Le transport de matériaux, la capture de jeunes et l’apport de nourriture par un adulte ne représentent pas le même type de preuve. L’interprétation du calendrier reproducteur résulte de l’examen conjoint de ces signes. Ne pas trouver de nid ne signifie pas qu’il n’y ait jamais eu de reproduction ; cela signifie qu’on ne dispose pas de données exactes sur les œufs et l’incubation.
L’étude a noté du transport de matériaux en avril et de nourriture en juin ; des jeunes ont également été vus à d’autres dates. Cela ne permet pas de construire un calendrier où chaque groupe pondrait le même jour chaque année. Les deux périodes d’activité associées aux pluies doivent être lues comme une interprétation propre au site étudié. On ne transpose pas les dates à un autre pays simplement parce que les pluies y portent le même nom. Décrire l’événement réel et son lieu renseigne davantage qu’une seule case colorée d’un calendrier.
Paraître silencieux ne signifie pas l’être
Les fins cris de contact peuvent disparaître sous les appels d’oiseaux voisins plus bruyants. Le fait que les chercheurs aient mieux suivi le groupe dans la végétation après en avoir appris les voix montre que l’expérience influence le nombre de données. Un visiteur peut ne rien voir et un autre rencontrer régulièrement l’espèce au même endroit ; une simple différence d’abondance ne suffit pas à l’expliquer. Vérifier d’abord quel oiseau émet le son, puis répéter la même méthode, fournit des observations plus comparables.
Individus marqués et observations de groupes
Suivre longtemps de petits groupes vivant sous le couvert révèle des comportements qu’une seule photographie ne montrerait pas. La recapture des deux mêmes adultes marqués peut établir la continuité des individus ; déclarer que des groupes non marqués constituent la même famille d’après leur seul aspect n’a pas la même valeur probante. Laisser explicites les inconnues indique aussi quelles lacunes de nouvelles données de terrain pourraient combler.