Oiseaux du monde Statut UICNLC · Préoccupation mineureCatégorie mondiale de l'UICN. BirdLife v10 (2025) ; correspondance taxonomique : AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L'année de la liste n'est pas la date d'évaluation de l'espèce. Source et méthode · BirdLife OrdrePasseriformesPassereaux FamilleMuscicapidaeMuscicapidae
Traquet afroalpin
Pinarochroa sordida
Ce petit oiseau à courte queue et longues pattes habite les prairies de haute montagne d’Afrique orientale. Aspect brun simple, posture dressée et blanc externe de la queue en vol s’évaluent ensemble.
Biométrie
Longueur
Mâle14–15 cm
Femelle14–15 cm
Valeur commune à l’espèce
Longueur de l’aile
Mâle7,47 cm
Femelle7,47 cm
Valeur commune à l’espèce
Poids
Mâle18–19 g
Femelle20–23 g
Traquet afroalpin
Hautes terres d’Éthiopie, d’Ouganda, du Kenya et du nord de la TanzanieGuide d’observation dans son aire naturelle
Recherchez trois caractères ensemble
Ne vous fiez pas à un seul caractèreElles ressortent dans la posture dressée ; une queue fermée peut cacher le blanc.
Avec centre et bande terminale sombres, il peut former un T renversé ; d’autres traquets ont un motif semblable.
On cherche de courts mouvements entre prairie rocheuse, plantes basses et sol nourricier.
Comparer mâle et femelle
 FemelleMâle
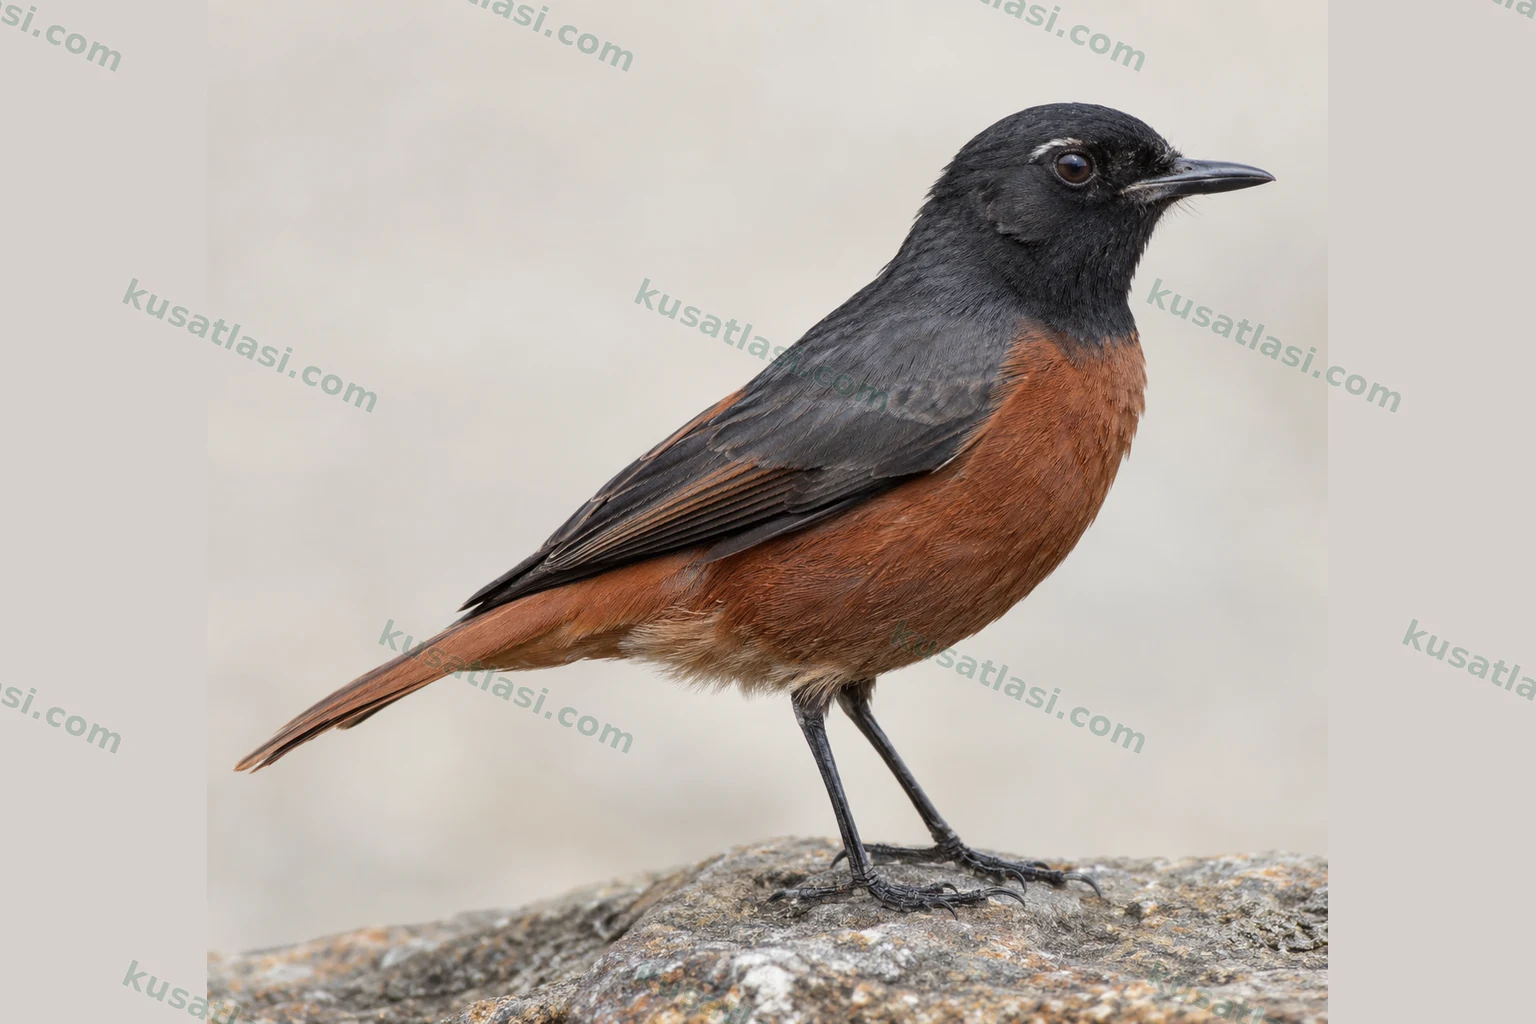
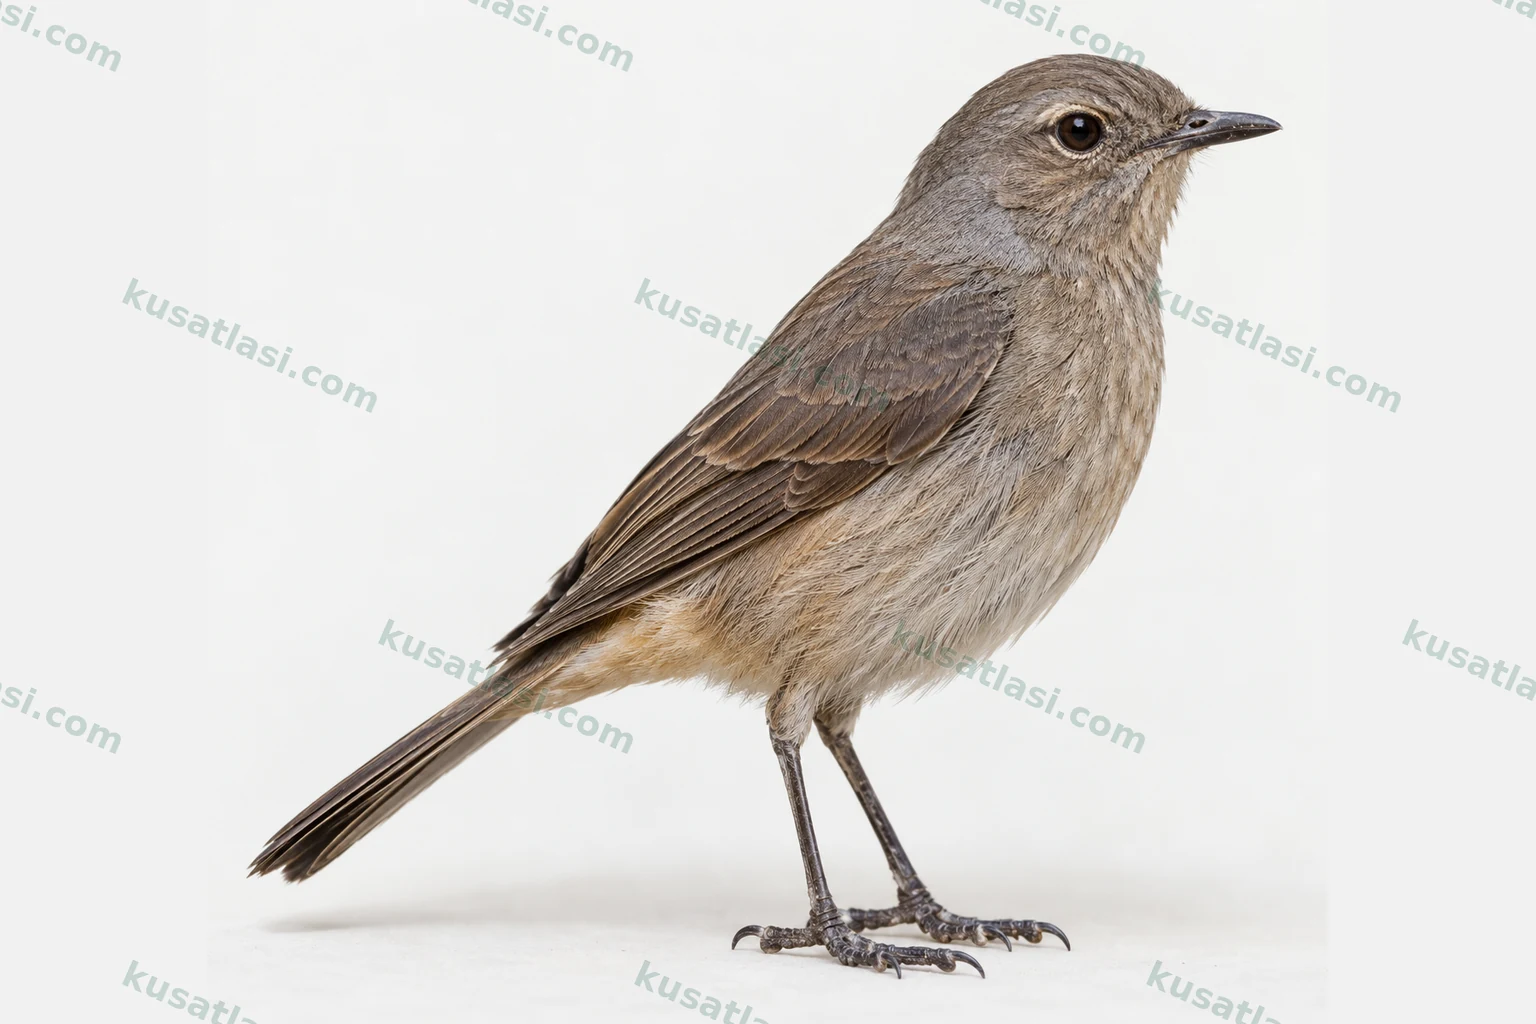
Les adultes mâles et femelles ne se séparent pas avec fiabilité à l’aspect. De simples nuances ne donnent pas le sexe. Les jeunes ressemblent globalement aux adultes ; si développement des plumes et comportement ne sont pas visibles, l’âge reste incertain.
Où le chercher dans son aire naturelle ?
Depuis un sentier existant, regardez pierres et plantes basses des prairies ouvertes de montagne. Attendez que l’oiseau gagne seul un perchoir ; ne le nourrissez pas et n’ouvrez pas le couvert pour chercher les nids.
L’espèce est principalement sédentaire. Les sources examinées ne fournissent ni périodes mensuelles de ponte vérifiées pour toute l’aire ni route migratoire régulière. Les nombres d’observations ne deviennent pas une probabilité de reproduction.
Tous les mois : principalement sédentaire. Aucun calendrier régional de reproduction vérifié n’a été trouvé pour ce mois.
Janvier
Février
Mars
Avril
Mai
Juin
Juillet
Août
Septembre
Octobre
Novembre
Décembre
Nid, œuf et incubation
La fiche spécialisée décrit un nid en coupe de fibres végétales, brindilles et matériaux extérieurs de soutien, garni de matières douces. La compilation de vie donne trois œufs, la fiche spécialisée des cas de trois–quatre œufs. Aucune durée d’incubation ni âge de premier vol fiables et propres à l’espèce n’ont été trouvés. On ne soulève pas les pierres et n’écarte pas la végétation pour chercher les nids ; les oiseaux transportant de la nourriture ne sont pas suivis de près.
Le cri d’alarme se distingue du sifflement mécanique produit par les battements rapides au décollage. L’expérience de Bale a examiné les deux séparément. Situation sonore et image s’évaluent ensemble ; on n’en conclut pas un gardien protégeant régulièrement d’autres animaux.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Informations sur l’espèce
Identification rapide
Le Traquet afroalpin Pinarochroa sordida est un petit oiseau rond à queue courte des prairies de haute montagne d’Afrique orientale. Il semble d’abord brun uni ou gris brun. Le meilleur ensemble associe longues pattes mises en évidence par la posture dressée, dessous clair et plumes caudales externes blanches révélées en vol. Centre sombre et bande terminale de la queue ouverte dessinent un T renversé. Ce motif ne suffit pas : d’autres traquets peuvent en montrer un semblable.
Le nom anglais Moorland Chat correspond au scientifique accepté Pinarochroa sordida. Cercomela sordida des anciens travaux est le précédent classement générique. Le mot turc bülbül de son nom ne le place pas dans le genre des vrais rossignols. La génétique a montré que des traquets semblables ne sont pas toujours leurs plus proches parents. Il est aujourd’hui le seul représentant de son genre ; sa couleur simple n’est pas un signe de terrain permettant de lire cette position évolutive distincte.
Aspect général et posture
Tête et corps ne contrastent pas fortement. Le dos est le plus souvent brun ; les rémiges sombres peuvent avoir de fines bordures plus pâles. Gorge, poitrine et ventre sont plus clairs que le dessus. Chez certains le dessous approche le gris, chez d’autres le brun pâle. Les plumes entre œil et bec et celles couvrant l’oreille peuvent paraître plus sombres et encadrer la face. Le cercle oculaire clair est étroit et sa visibilité dépend de la lumière ; ce n’est pas un fort sourcil blanc.
Les yeux sont brun sombre. Bec et pattes sont foncés, décrits du gris brun au presque noir. Dressé sur une pierre, il paraît haut sur pattes ; accroupi, plus rond de corps. Ces postures modifient la taille apparente du même individu. Queue courte, aile fermée et dessous clair offrent ensemble plus de fiabilité que la seule couleur. Le blanc externe de la queue peut être caché quand elle est fermée.
Mâles, femelles et jeunes
Les sexes adultes ne se distinguent pas avec fiabilité par l’aspect. Une étude de Bale a photographié un adulte en détail sans déterminer son sexe ; les chercheurs indiquent expressément l’absence de dimorphisme visible. Aucune différence de couleur obligatoire n’est attendue entre planches mâle et femelle. Un individu plus clair, plus sombre ou plus droit ne révèle pas ainsi son sexe. Sous-espèce, éclairage et état du plumage influencent aussi l’apparence.
Les jeunes ressemblent globalement aux adultes. Le ton brun ne suffit pas pour l’âge ; développement des plumes, ailes et queue et éventuelle relation parentale sont évalués ensemble. Aucun motif juvénile non vérifié n’est imposé à tous. Un petit oiseau volant seul ne prouve pas non plus une alimentation entièrement autonome. Si la distance cache les détails, laisser l’âge incertain est préférable à une fausse assurance.
Des individus très pâles, hors de l’aspect brun ordinaire, ont aussi été signalés.
Aspect en vol
Les déplacements quotidiens sont surtout de courts vols et bonds près du sol. Il peut descendre d’une pierre, plante basse ou hampe florale puis regagner un perchoir. Les côtés clairs de la courte queue ressortent en vol. Repérer le centre et la barre terminale sombres peut être plus facile que lire la teinte générale pendant les battements rapides. Après avoir vu le blanc caudal, attendre le posé permet de vérifier corps et pattes.
Le travail de Bale a aussi enregistré un sifflement issu des battements rapides au décollage. Ce bruit mécanique est distinct du cri d’alarme produit par l’organe vocal. Réunir les deux sous le même type de voix modifie l’interprétation. La sédentarité ne rend pas impossibles des vols plus longs. Aucun itinéraire migratoire, distance de vol ou limite fixe de dispersion ne se déduit des courts mouvements journaliers.
Voix et comportement
Il progresse par petits bonds en cherchant près du sol, puis gagne un point bas d’observation. Certains approchent une personne immobile, sans justifier nourrissage ou obstruction de leur passage. Ses allers-retours parmi les plantes de montagne concordent avec la collecte au sol. Une alarme peut indiquer que l’oiseau a été remarqué ; les mouvements environnants sont aussi suivis pour comprendre la cause. Une réaction ou son absence à une autre espèce ne se généralise pas d’un seul cas.
Son association avec les rats-taupes géants est instructive. Il peut prendre les invertébrés des terres et débris végétaux expulsés des terriers. Une association d’alarme bénéfique aux deux a été proposée. Mais la repasse expérimentale de Bale a suscité peu de réponse des rats-taupes au cri de l’oiseau, davantage au cri d’un autre rongeur. Cela ne confirme pas un rôle régulier de sentinelle protectrice. Occasion alimentaire observée et hypothèse de bénéfice mutuel restent distinctes.
Espèces ressemblantes
Oenanthe familiaris a une apparence brunâtre simple proche, mais croupion et zones claires de la queue sont roux orangé. Les rectrices externes de Pinarochroa sordida sont blanches. Si le coloris se lit mal, on examine rondeur du corps, courte queue et posture. L’éclat d’un bref vol ne sépare pas forcément blanc et roux avec fiabilité.
Oenanthe oenanthe peut troubler par le croupion blanc et le T caudal sombre renversé. Le dessus gris, la face noire et les ailes noires plus marquées du mâle adulte aident ; femelles et jeunes contrastent moins. On ne s’arrête pas à la queue : courte queue, corps rond et face simple de Pinarochroa sordida comptent aussi. Le seul lieu de prairie montagnarde ne sépare pas ces oiseaux.
Répartition mondiale
Pinarochroa sordida est lié aux hautes terres orientales et nord-orientales de l’Afrique. Son aire naturelle comprend des montagnes d’Éthiopie, d’Ouganda, du Kenya et du nord de la Tanzanie, sans occuper toute la superficie de ces quatre pays. Prairies montagnardes et espaces ouverts élevés offrent des conditions différentes des plaines basses. Bale, les hautes montagnes kenyanes et le nord montagneux tanzanien abritent différentes formes régionales. Les frontières nationales ne sont pas les limites de son habitat.
La synthèse taxonomique actuelle reconnaît quatre sous-espèces : sordida en Éthiopie, ernesti en Ouganda et au Kenya, olimotiensis dans les hauts plateaux des cratères du nord tanzanien et hypospodia au Kilimandjaro. Une photographie éthiopienne ne représente pas forcément la nuance de toute l’espèce. Cercomela désignait anciennement le même oiseau ; le changement générique ne transforme pas une observation en autre espèce. L’identité taxonomique doit être mise en correspondance.
Situation dans l’aire naturelle
L’espèce peut être localement fréquente dans les espaces ouverts adaptés de haute montagne. Les observations de Bale décrivent des pentes rocheuses herbeuses et des oiseaux se nourrissant entre de grandes hampes florales. Le guide des habitats du parc l’inclut aussi parmi les oiseaux des hauteurs. Cela soutient une présence locale, pas la même densité à chaque endroit de la chaîne. L’absence de données dans un secteur peu visité ne prouve pas non plus l’absence réelle.
Déplacements migratoires
L’espèce est principalement sédentaire ; courts vols entre lieux d’alimentation et mouvements bas sont fréquents. Aucune migration saisonnière lointaine ni route par pays n’étant vérifiée, on n’en dessine pas. Cela ne signifie pas que chaque individu reste toute sa vie sur la même pierre ou dans la même vallée. Mouvement local et migration lointaine sont séparés. Effort et accès modifient aussi le nombre mensuel de données ; beaucoup d’observations un mois ne prouvent pas directement migration ou reproduction.
Milieu de reproduction
Les prairies ouvertes et landes herbeuses des hautes montagnes constituent le milieu principal. Rochers, végétation basse, prairies humides et terres cultivées voisines peuvent être utilisés ensemble. Les ouvertures proches ou au-dessus de la limite des arbres importent sans que l’altitude seule rende tout endroit favorable. L’étude de Bale s’est déroulée vers 3 500 m : altitude d’un site étudié, non limite inférieure ou supérieure fixe de tous les individus. Sol, végétation et occasions alimentaires s’évaluent ensemble.
Emplacement du nid
La reproduction est moins documentée que l’aspect et l’alimentation. La fiche spécialisée décrit une coupe de brindilles et fibres végétales, avec mousse et matériaux semblables à l’extérieur ; poils doux et plumes peuvent garnir l’intérieur. La compilation de vie donnant généralement trois œufs n’est pas interchangeable avec la fiche mentionnant des cas à trois–quatre œufs. Aucune durée d’incubation ni âge de premier vol fiables et propres à l’espèce n’ont été trouvés. Les délais d’espèces proches ne remplissent pas ces lacunes. On ne soulève pas les pierres, n’ouvre pas les bases végétales ni ne suit de près les oiseaux chargés de nourriture.
Utilisation quotidienne de l’espace
Les courts trajets entre perchoirs bas et sol nourricier sont visibles. Pierre, petit buisson ou grosse hampe florale peuvent servir d’observatoire. L’individu suivi en détail à Bale en octobre 2022 se nourrissait parmi des Kniphofia et près du sol sur une pente rocheuse ; ce cas n’établit pas une dépendance exclusive à cette plante. Les tas de terre des rats-taupes peuvent aussi offrir de la nourriture. On attend l’apparition depuis le sentier. La confiance apparente ne justifie ni piétinement du couvert montagnard sensible ni nourrissage.
Que mange-t-il ?
Les petits invertébrés comptent dans son alimentation. Les prises au sol et près des plantes basses correspondent aux déplacements quotidiens des prairies ouvertes de montagne. À Bale, des invertébrés ont été consommés dans terre et débris expulsés par les rats-taupes géants. L’oiseau exploite cette occasion ; il n’est pas dit qu’il chasse le rongeur ou partage sa nourriture. L’étude n’a pas non plus montré que toute sa nourriture venait de ces tas.
La relation florale a été étudiée scientifiquement. Les travaux de Martin Burd sur Lobelia deckenii ont montré des visites pour le nectar et une contribution à la pollinisation. Cela ne rend pas l’oiseau exclusivement nectarivore. Collecte d’invertébrés et visites florales sont deux aspects du régime. Une plante montagnarde précise ne fixe pas les mêmes proportions sur toute l’aire ; aucun pourcentage général n’en est déduit.
Comment cherche-t-il sa nourriture ?
Il progresse par petits bonds au sol ou collecte autour d’un perchoir bas. Suivre les trajets entre pierre et pied des plantes aide à comprendre où il regarde et sur quelle surface il prend la nourriture. Terre, bord de débris et hampes florales sont des sites distincts. Si un minuscule objet dans le bec reste indistinct, on n’en fixe ni famille d’insecte ni taille précise.
Dans les expériences sur Lobelia, accroître la récompense florale n’a pas influencé toutes les espèces d’oiseaux de la même manière. Quand Nectarinia johnstoni défendait davantage les fleurs, les visites de Pinarochroa sordida diminuaient. Cette expérience locale montre que les interactions, autant que la nourriture, peuvent influer sur l’usage floral. Observer ne demande ni eau sucrée ajoutée ni aliment humain : le comportement naturel se regarde de loin.
Aspect simple et position évolutive distincte
L’espèce était autrefois placée dans Cercomela avec plusieurs oiseaux semblables. L’étude génétique d’Outlaw, Voelker et Bowie a montré que ce groupe ne formait pas une seule branche de proches parents ; Pinarochroa sordida s’en séparait nettement. Cela explique les anciens et nouveaux genres côte à côte dans les sources. La proposition taxonomique ne signifie ni changement soudain d’aspect ni autre espèce pour les anciennes observations.
Toute visite florale n’a pas le même effet
Les recherches sur Lobelia deckenii ont mesuré sa contribution à la pollinisation en examinant fréquence des visites, recherches alimentaires par visite et graines produites. Plus de nourriture n’a pas accru également tous les visiteurs. La défense florale d’un autre oiseau a pu réduire son accès. Le résultat n’est pas un rôle unique ou dominant partout, mais une relation mesurée avec une plante montagnarde précise.
Ce qu’enseigne un individu très blanc
L’adulte observé à Bale en octobre 2022 avait la majorité des plumes blanches et des yeux brun sombre normaux ; certaines plumes des ailes et de la queue restaient partiellement sombres. Les auteurs ont envisagé un éclaircissement progressif et demandé un suivi des mues pour préciser la cause. Un individu inhabituel n’a pas fondé de nouveau dessin sexuel, sous-espèce ou maladie de toute la population. Des plumes blanches ne prouvent pas directement l’albinisme. Date et état des plumes avec la photo rendent ces observations plus utiles.
Occasion alimentaire et coopération d’alarme diffèrent
L’occasion alimentaire fournie par les déblais du rat-taupe a été observée. L’idée que l’oiseau avertisse régulièrement le rongeur a en revanche reçu peu de soutien expérimental. Les rats-taupes réagissaient peu à l’alarme de l’oiseau et davantage à un autre rongeur. Deux êtres peuvent tirer avantage d’une cohabitation, mais chaque dimension doit être testée séparément. Décrire leur présence ensemble comme protection mutuelle dépasse l’observation.