Oiseaux du monde
Planches d’identification de terrain
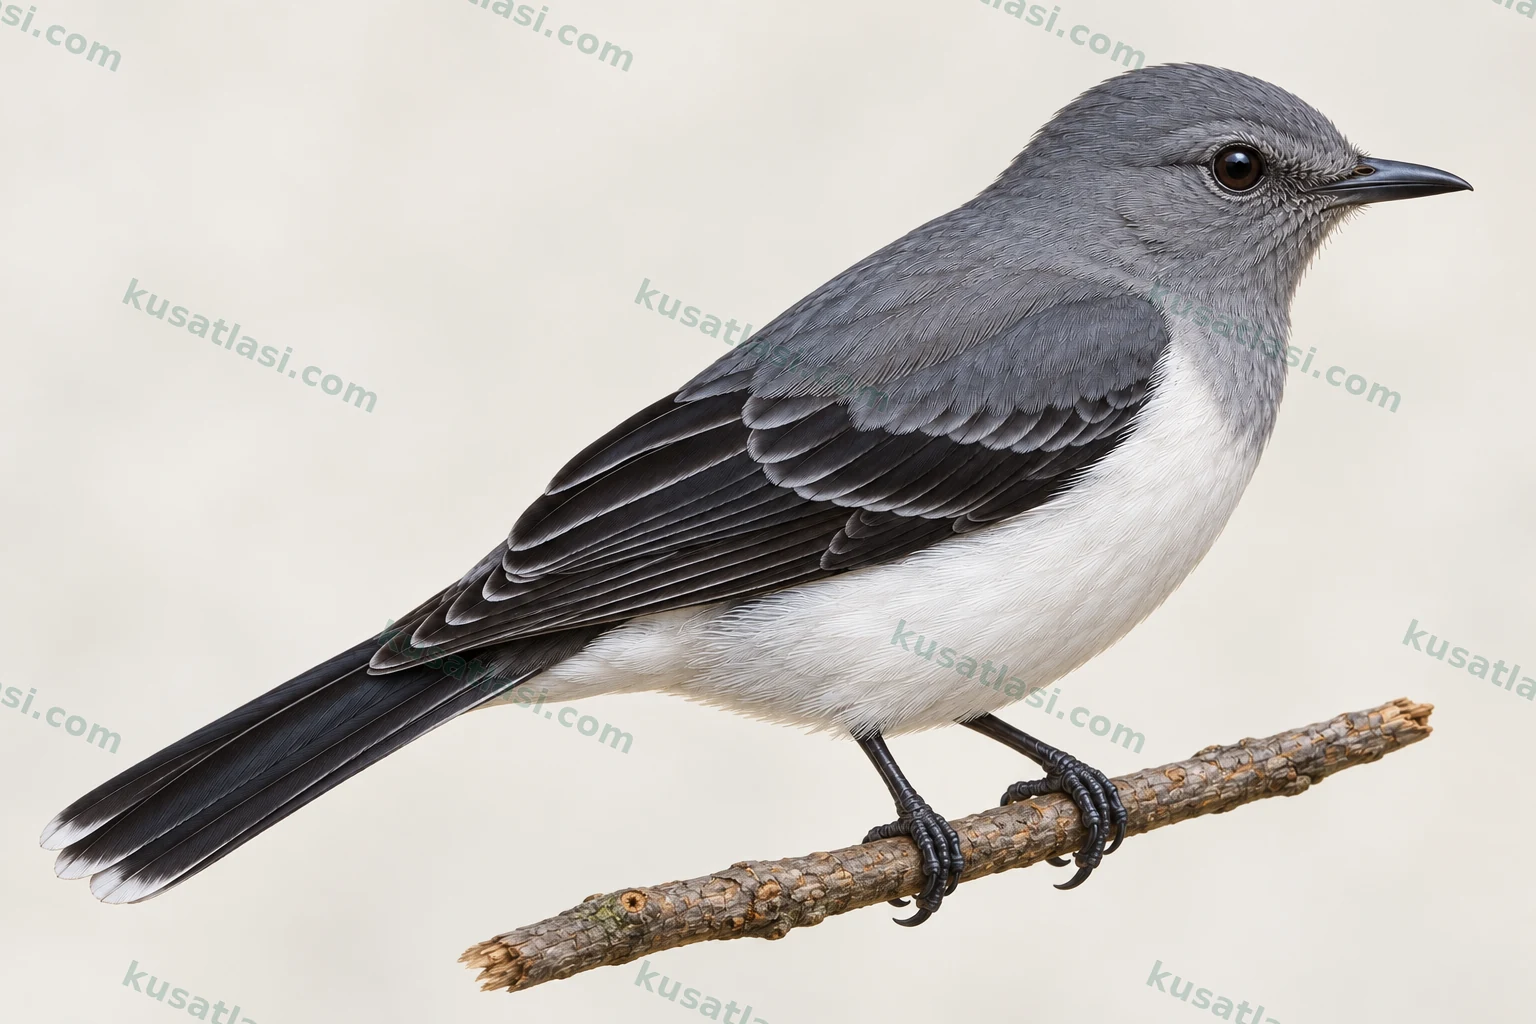
Balayez à gauche ou à droite entre les deux planches d’adultes.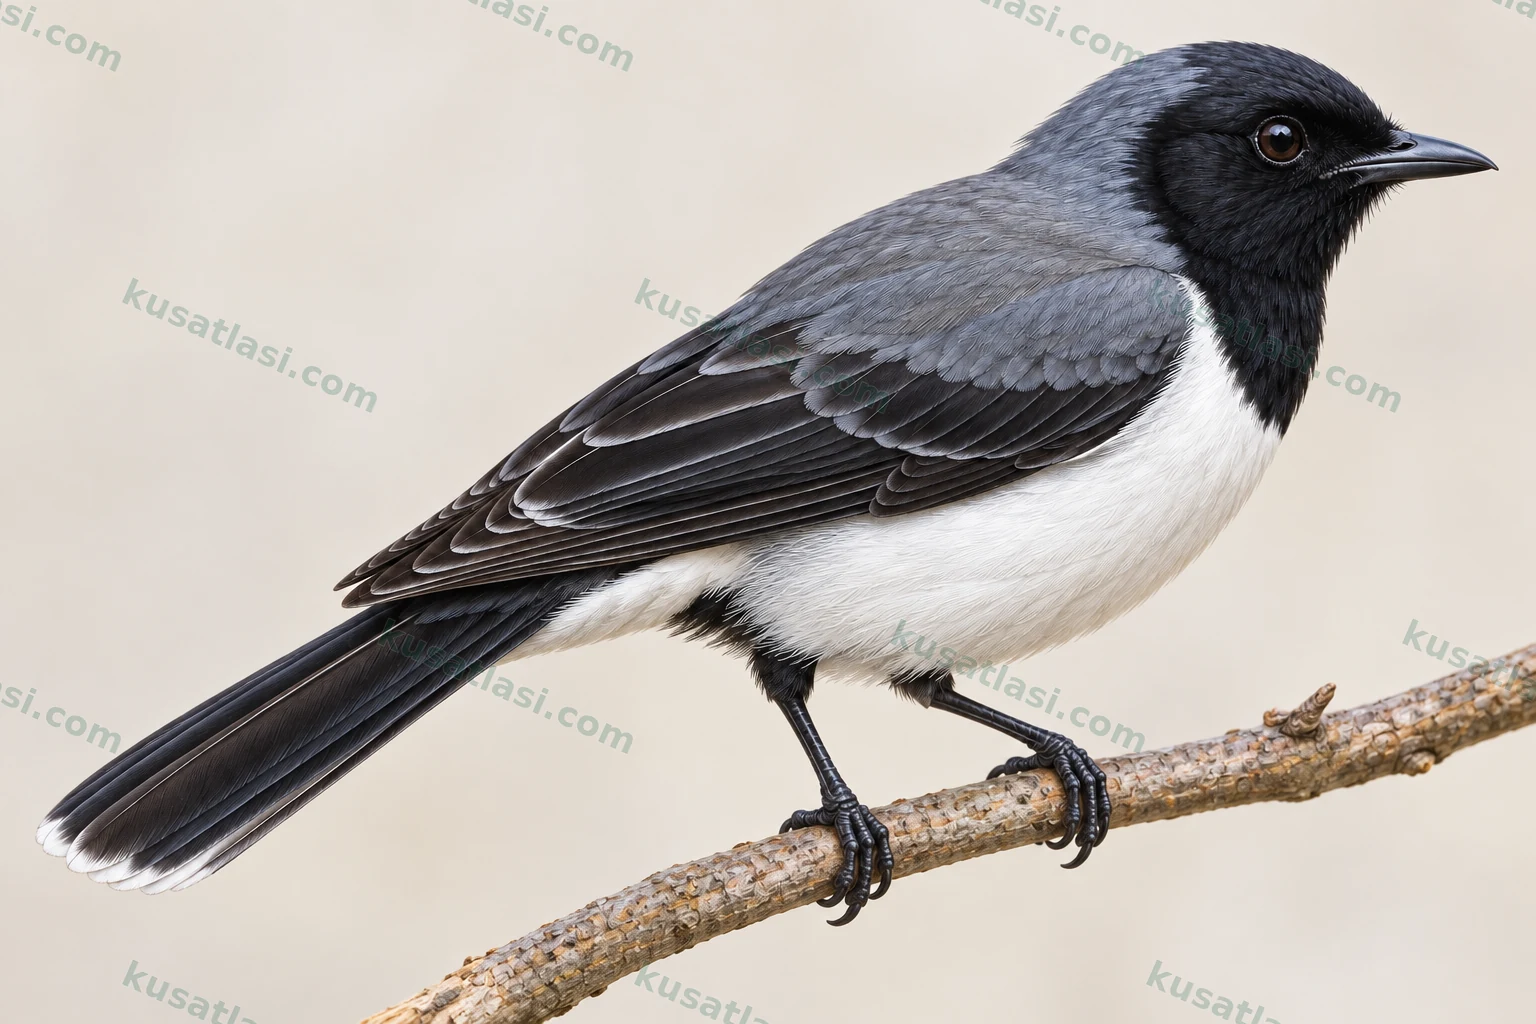
Campephagidae
Échenilleur d’Abbott
Celebesica abbotti
Pygmy Cuckooshrike
Comparez les couleurs du dos et du dessous avec les plumes sombres des ailes.
- Ordre
- Passeriformes
- Statut UICN
- LCPréoccupation mineure
Catégorie mondiale de l'UICN. BirdLife v10 (2025) ; correspondance taxonomique : AviList 2026 / IOC 15.2 ; vérification : 29.10.2026. L'année de la liste n'est pas la date d'évaluation de l'espèce.
Source et méthode · BirdLife
Au premier regard
- Dessus gris, dessous blanc
Comparez les couleurs du dos et du dessous avec les plumes sombres des ailes.
- Différence faciale entre sexes adultes
Le mâle a la face et la gorge noires ; la même zone est grise chez la femelle. Une ombre ne prouve pas le sexe à elle seule.
- Un oiseau forestier de la canopée
Recherchez-le seul, en couple ou dans des groupes mixtes d’oiseaux des forêts montagnardes de Sulawesi.
Biométrie
Longueur
- Mâle
- 20 cm
- Femelle
- 20 cm
Longueur de l’aile
- Mâle
- 11,01 cm
- Femelle
- 11,01 cm
Masse
- Mâle
- Données indisponibles
- Femelle
- Données indisponibles
Longueur: Valeur commune à l'espèce Longueur de l’aile: Valeur commune à l'espèce
Répartition mondiale
Échenilleur d’Abbott
Personnaliser les couches de la carte
Points d’observation
Préparation du globe…
Nombre mensuel de données
Les barres indiquent le nombre de données de cet échantillon, et non l’abondance des oiseaux ou un calendrier reproducteur. Elles dépendent de l’effort de saisie et d’observation.
Faites tourner le globe et comparez les couches. Les zones colorées ne sont pas des emplacements précis d’observation ou de nid.
La source ne fournit pas de limites mensuelles vérifiées de répartition. Toutes les zones sont affichées ; le curseur des mois et l’animation mensuelle sont donc désactivés.
- Jan
- Avr
- Jui
- Oct
- Déc
Données généralisées et méthode
Fond de carte: Natural Earth · Domaine public
Ouvrir la bibliographie centrale ↗Calendrier
Aucune donnée fiable n’a été trouvée sur les variations mensuelles de reproduction et d’abondance dans toute l’aire. Le calendrier ne considère pas l’absence de données comme une absence de l’oiseau.
Tous les mois : Données mensuelles non vérifiées.
Janvier
Février
Mars
Avril
Mai
Juin
Juillet
Août
Septembre
Octobre
Novembre
Décembre
Habitat
Forêts montagnardes de Sulawesi
Observez la canopée et les groupes mixtes d’oiseaux dans les forêts montagnardes de Sulawesi.
Voix
Des cris fins, aigus et courts ainsi qu’une courte séquence chantée ont été signalés. Une comparaison écrite ne remplace pas un enregistrement. Aucun véritable enregistrement de l’oiseau dont l’identité, le type de son, la qualité et la licence individuelle ont été vérifiés n’a encore été associé à la page.
Ne diffusez pas d’enregistrements pour attirer les oiseaux ; observez en silence, surtout près des nids.
Reproduction
Aucun détail propre à l’espèce et vérifié n’a été trouvé sur l’emplacement et la structure du nid, le nombre habituel d’œufs, la durée d’incubation ou l’âge de l’envol. Des jeunes signalés en novembre, décembre et mars ne montrent pas que la reproduction ne se déroule que pendant ces mois sur toute l’île. Ces observations ne remplacent pas un calendrier reproducteur définitif. Les oiseaux ne doivent pas être suivis et dérangés pour trouver un nid ; les sites potentiellement sensibles ne sont pas diffusés publiquement.
Comparer
Comparer mâle et femelle
Le mâle a la face et la gorge noires ; la même zone est grise chez la femelle. Une ombre ne prouve pas le sexe à elle seule.
Informations sur l’espèce
Identification rapide
L’Échenilleur d’Abbott est un passereau gris, noir et blanc des forêts montagnardes de Sulawesi. Le gris sombre du dos et la blancheur claire de la poitrine et du ventre attirent d’abord l’attention. Le mâle adulte a la face et la gorge d’un noir brillant ; chez la femelle, ces zones sont grises comme le dos. La couleur de la tête ne suffit pas à elle seule. Il faut examiner ensemble les parties inférieures claires, les plumes de vol sombres et la silhouette générale.
Aspect général et posture
Le dos et les petites plumes de couverture de l’aile proches du corps sont gris ardoise. Les grandes plumes de vol paraissent plus sombres ; le gris de leurs bords externes forme, sur l’aile fermée, une fine transition avec le dos. La paire centrale de plumes de la queue est plus proche du gris, tandis que les plumes externes sont sombres. Des bandes grises près de l’extrémité des plumes externes de la queue et de très fins liserés terminaux blancs ont été décrits sur des spécimens historiques de musée. Ces détails ne sont pas aussi nets chez tous les individus ; il serait faux d’imaginer que toute la queue porte de larges extrémités blanches.
Il est utile d’observer l’oiseau sous plusieurs angles. Selon la direction de la lumière, la tête et le dos peuvent paraître plus sombres que le croupion ; il faut distinguer une ombre d’une véritable limite du plumage. La couleur de l’œil s’évalue également sous une bonne lumière.
L’œil est rouge, le bec et les pattes sont noirs. L’œil rouge est un détail petit mais utile ; il peut s’assombrir dans l’ombre des feuilles et ne pas être discernable à distance. Sur l’aile fermée, les plumes grises proches du corps et les longues plumes de vol noires constituent des zones distinctes. Chez le mâle, la limite entre la poitrine blanche et la gorge noire crée un contraste plus marqué. Chez la femelle, la gorge grise se fond plus doucement dans la poitrine blanche. Deux adultes dans le même arbre peuvent donc présenter des têtes différentes tout en partageant le même dessin corporel.
Mâles, femelles et jeunes
Chez le mâle, la zone entre le bec et l’œil, le dessus de l’œil, les joues et la gorge font partie de la plage noire bien marquée. Chez la femelle, ces zones sont grises. Les parties inférieures claires et le dessus gris constituent l’aspect de base commun aux deux sexes adultes. Une face assombrie sur une photo ne prouve pas la présence du masque noir du mâle ; il faut vérifier si les limites subsistent quand la lumière change.
Le compte rendu fiable de l’espèce ne décrit pas en détail le plumage des jeunes et des oiseaux en transition vers l’âge adulte. Un aspect de femelle ne doit donc pas être automatiquement qualifié de jeune mâle. Si une photographie permet seulement de distinguer le sexe d’un adulte, il ne faut pas ajouter de certitude sur son âge. Des observations datées et plusieurs angles en lumière naturelle sont plus utiles qu’une seule photo très sombre.
Les plumes noires des cuisses forment de petites zones sombres à côté du ventre blanc. Il ne faut pas les interpréter comme une couleur couvrant toute la patte ; la partie nue de la patte et les plumes situées au-dessus s’évaluent séparément. La netteté des fins liserés clairs et des bandes grises de la queue varie dans la série historique de mâles. Des liserés peu visibles ne permettent pas, à eux seuls, de classer un adulte comme femelle ou jeune. Le caractère visible le plus utile pour distinguer les sexes est la face et la gorge, noires ou grises sous une bonne lumière.
Aspect en vol
Sur le dessus de l’aile, on examine la relation entre les couvertures grises et les plumes de vol sombres ; en dessous, les couvertures sous-alaires blanches. Le blanc révélé par l’ouverture de l’aile ne signifie pas que toute l’aile est blanche. Les faces supérieure et inférieure ne présentent pas la même répartition des couleurs ; une photographie en vol ne doit pas être identifiée avant d’avoir déterminé la face qu’elle montre.
Les marques très fines de la queue peuvent être invisibles sur des vues en vol lointaines. Le renouvellement du plumage peut aussi modifier la longueur des plumes de vol et l’aspect du bord de l’aile. Dans son étude de spécimens, Riley indique que de nombreux oiseaux ont été mesurés pendant le renouvellement de leurs plumes alaires. Cette observation ne fixe pas un mois particulier comme période de mue pour toute l’espèce.
Voix et comportement
L’oiseau peut être observé seul, en couple ou en petit groupe dans la canopée de la forêt montagnarde ; il rejoint aussi des groupes alimentaires réunissant différentes espèces d’oiseaux. Sa présence dans un tel groupe ne signifie pas que tous les oiseaux vus appartiennent à la même espèce. Les caractères du corps, de la face et des ailes décrits ailleurs doivent être vérifiés séparément sur chaque individu.
Le cri est décrit comme un son bref, fin et aigu, descendant vers la fin, qui peut être transcrit par “thip”. Le chant commence par des notes douces, suivies d’une courte suite de quatre notes. Le cri de vol est un son incisif rappelant “tseet”. Différents observateurs pouvant écrire le même son avec des syllabes différentes, ces comparaisons décrivent seulement la structure à rechercher dans un enregistrement. Si l’oiseau reste dans les feuilles, regardez vers l’origine du son ; ne lui attribuez pas tous les cris d’un groupe mixte.
Espèces semblables
Chez les oiseaux forestiers gris de la même région, il faut comparer ensemble les limites de couleur entre la face, le dessus et le dessous du corps. Un dessus gris ne suffit pas à identifier l’Échenilleur d’Abbott. Une brève vue de la tête entre les feuilles peut être insuffisante. Privilégiez une observation montrant ensemble les parties inférieures claires, le dessin de la tête correspondant au sexe adulte et l’aile. Une image étiquetée sous un autre nom scientifique ne constitue pas une preuve de cette espèce simplement parce que les noms se ressemblent.
Edolisoma morio, également présent à Sulawesi, est un autre échenilleur à tête sombre. Dans les spécimens de Riley, les mâles de cette espèce ont une poitrine variant du noirâtre au gris ; les parties inférieures d’un blanc clair de l’Échenilleur d’Abbott sont particulièrement importantes pour la comparaison. Une tête noire ne suffit pas à séparer les deux espèces. Sur un oiseau à poitrine grise ou sombre, il faut examiner toute la répartition des couleurs de la tête au ventre plutôt que chercher uniquement un œil rouge. Les différences que la publication historique envisageait comme liées à l’âge ne doivent pas être utilisées comme une clé d’âge définitive.
La comparaison repose sur les parties de l’oiseau réellement vues. Si les feuilles cachent le ventre ou la poitrine, la distinction entre un dessous blanc ou gris reste incertaine ; attendez une seconde vue naturelle sans faire sortir l’oiseau de son couvert. Une vue arrière du dos gris peut masquer la poitrine blanche. Sur l’aile ouverte, la zone claire du dessous appartient aux couvertures, pas à toutes les longues plumes de vol ; une photo du dessus ne prouve pas la couleur du dessous. L’œil rouge peut être invisible sur une photo en vol. Rejoindre une troupe ne signifie pas appartenir à la même espèce que l’oiseau voisin. Les parties cachées ne doivent pas être reconstituées à partir du lieu ou de l’apparence d’un autre oiseau.
Répartition mondiale
L’aire naturelle est associée aux forêts montagnardes de l’île indonésienne de Sulawesi. Le compte rendu de l’espèce mentionne les montagnes du nord, du nord-est, du centre et du sud-est. Cette description régionale ne doit pas être dessinée comme une zone continue couvrant toutes les côtes de l’île ou toutes les îles voisines.
Situation dans son aire naturelle
Une partie des spécimens historiques provient de Rano Rano, dans le centre de Sulawesi. C’est la région où ont été récoltés les premiers spécimens associés au nom scientifique. Le lieu de collecte d’une série de musée ne détermine pas, à lui seul, toutes les limites de la répartition actuelle. Les sites d’observation actuels et le milieu naturel doivent être examinés ensemble.
Déplacements
Aucun itinéraire migratoire régulier n’a été vérifié ; on ne dessine donc pas de succession de pays ni de trajet saisonnier à l’aide de flèches. L’absence de données sur les déplacements ne prouve pas qu’aucun individu ne se déplace sur de courtes distances. Les points d’observation ne remplacent ni l’aire naturelle ni les limites de reproduction.
Le parc national de Lore Lindu figure parmi les espaces protégés où l’espèce a été signalée. La donnée historique de Rano Rano et la mention du parc dans le compte rendu actuel indiquent l’importance du centre de Sulawesi ; ces deux informations ne constituent pas un recensement de population. Une fréquence locale élevée à un endroit ne démontre pas la même densité dans toutes les montagnes. Le compte rendu spécialisé consulté décrit une abondance locale allant de commune à faible.
L’intérieur montagneux de Sulawesi constitue le contexte géographique naturel de l’oiseau. Aucun trajet régulier par-dessus la mer vers les îles voisines n’a été vérifié. La description de l’aire n’est donc pas étendue à toute l’Indonésie ; les forêts montagnardes et les frontières du pays s’examinent à des échelles différentes.
Habitat
La canopée des forêts montagnardes constitue le principal cadre d’observation. Le compte rendu spécialisé souligne les forêts entre 1200–2500 m, principalement au-dessus de 1400 m. Ces altitudes ne forment pas des limites inférieure et supérieure strictes sur chaque versant ; l’altitude des observations locales doit être examinée séparément.
Emplacement du nid
Aucun détail propre à l’espèce et vérifié n’a été trouvé sur l’arbre porteur, la structure du nid ou sa hauteur au-dessus du sol. Les informations de nidification d’autres échenilleurs ne sont pas transférées à cet oiseau.
Utilisation quotidienne de l’espace
En suivant les groupes mixtes d’oiseaux qui circulent dans la canopée, recherchez de petits oiseaux gris et blancs parmi les feuilles. Utilisez les chemins autorisés plutôt que d’entrer dans la forêt ou de tenter d’en faire sortir les oiseaux. Respectez les conseils locaux et les règles de conservation pour les observations sensibles.
Se nourrir dans la canopée implique une approche différente de la recherche de l’oiseau dans les fourrés denses au niveau du sol. Observez la couronne forestière visible en sécurité depuis le bord du chemin ; le dos gris peut n’apparaître que brièvement entre les feuilles. L’espèce se rencontrant seule, en couple ou avec d’autres espèces, la vue suivante peut concerner un autre individu. L’altitude et la structure forestière aident à l’identification, mais ne déterminent pas l’espèce à elles seules.
Le compte rendu spécialisé considère la perte de forêt comme une pression possible. Comme il ne fournit pas d’évaluation chiffrée de cet effet à l’échelle de toute l’aire, aucun pourcentage précis de déclin n’est indiqué.
Que mange-t-il ?
Son alimentation repose surtout sur les insectes. Aucune donnée propre à l’espèce et vérifiée n’a été trouvée sur le détail des proies et leurs proportions ; la présence de “mangeur de chenilles” dans son nom turc ne signifie pas que toute sa nourriture est constituée de chenilles.
Comment chasse-t-il ?
Il prélève des proies parmi les feuilles de la canopée. Le compte rendu spécialisé signale aussi, avec prudence, la capture de proies en l’air lors de courts vols. La proportion du temps d’alimentation consacrée à ce comportement étant inconnue, aucun pourcentage précis n’est donné.
Rechercher des proies dans l’étage supérieur feuillu indique où l’alimentation a lieu. Chez un individu rejoignant un groupe mixte, on ne lui attribue pas l’insecte mangé par une espèce voisine sans avoir observé ses propres mouvements de bec et son contact avec la proie. Un insecte visible dans le bec peut montrer que cette proie a été prise, mais ne révèle pas à lui seul tout le régime de l’espèce ou ses préférences au fil de l’année.
Prélever sur les feuilles et capturer une proie aérienne pendant un court vol sont des comportements différents. Le second est signalé dans le compte rendu spécialisé sans fréquence définie. Une migration lointaine pour se nourrir, une descente au sol, la consommation de fruits ou la dépendance à une espèce particulière de chenille n’ont pas été vérifiées et ne sont donc pas ajoutées au texte. Un régime principalement insectivore et une spécialisation dans un groupe particulier d’insectes ne sont pas la même affirmation.
Que révèlent les spécimens de musée ?
La publication de Riley de 1924 traite de sept mâles et de quatre femelles récoltés à Rano Rano en décembre 1917. La différence entre sexes sur la tête et la gorge n’est pas une hypothèse tirée d’une seule image ; elle a été explicitement comparée dans la série de spécimens. Toutefois, onze spécimens historiques ne représentent pas toute la variabilité actuelle de l’espèce.
Une mesure corrigée par son auteur
Riley indique explicitement que la description initiale ne donnait que les mesures du spécimen type et qu’il avait mal écrit la longueur de la queue. Présenter les intervalles d’une série plus large dans une publication ultérieure montre pourquoi un ancien chiffre ne doit pas être réutilisé sans vérifier son contexte. L’année de la source et ses corrections ultérieures sont aussi précieuses que la mesure elle-même.
Lumière et renouvellement du plumage
La teinte de la tête et du dos d’un même spécimen peut varier avec la direction de la lumière. Les fins liserés de la queue sont également plus ou moins nets selon les individus. En outre, le renouvellement des plumes de vol était en cours chez la plupart des spécimens. Des liserés pâles ne sont donc pas, à eux seuls, un indice fiable d’un autre sexe, âge ou sous-espèce.
Le même oiseau sous différents noms anciens
Les publications anciennes peuvent employer Celebesia abbotti ou Coracina abbotti. Le nom actuellement accepté est Celebesica abbotti. Rencontrer un ancien nom de genre ne signifie pas qu’il s’agit d’un autre oiseau ; le concept taxonomique et la date de la source doivent être vérifiés. Aucune mesure n’est transférée sans avoir fait correspondre le nom actuel de l’espèce à l’identité des spécimens historiques.